****
****

فصل 2 : شیمی شیر
مقدمه :
اجزای اصلی شیر عبارتاند از آب، چربی، پروتئینها، لاکتوز (قند شیر) و مواد معدنی (نمکها). شیر همچنین حاوی مقادیر جزئی از سایر مواد مانند رنگدانهها، آنزیمها، ویتامینها، فسفولیپیدها (موادی با ویژگیهای شبهچربی) و گازها است.
شیر مایعی سفید و کدر است که از غدد پستانی پستانداران ترشح میشود و هدف آن تغذیه نوزاد و تضمین دریافت مواد مغذی ضروری برای رشد و تکامل است. ازاینرو، ترکیب شیمیایی آن بسیار پیچیده است و ممکن است تحت تأثیر عوامل گوناگونی از جمله اقلیم، مرحله شیردهی، و نیز سن، وضعیت سلامت، تغذیه و نژاد دام قرار گیرد.
اجزای اصلی شیر عبارتاند از آب، چربی، پروتئینها، لاکتوز (قند شیر) و مواد معدنی (نمکها)، همراه با مقادیر جزئی از سایر مواد مانند رنگدانهها، آنزیمها، ویتامینها، فسفولیپیدها (موادی با خواص شبهچربی) و گازها. پس از حذف آب و گازها، باقیمانده را «ماده خشک» (DM) یا «کل مواد جامد» شیر مینامند.
برای توصیف اجزای شیر و چگونگی تأثیر مراحل مختلف فرآوری در صنایع لبنی بر آنها، لازم است از اصطلاحات شیمیایی استفاده شود. ازاینرو، این فصل درباره شیمی شیر با مروری کوتاه بر مفاهیم پایه شیمی آغاز میشود.
نمادهای شیمیایی عناصر رایج در مواد آلی به فارسی به شرح زیر است:
C — کربن (Carbon)
Ca — کلسیم (Calcium)
Cl — کلر (Chlorine)
H — هیدروژن (Hydrogen)
I — ید (Iodine)
K — پتاسیم (Potassium)
N — نیتروژن (Nitrogen)
Na — سدیم (Sodium)
O — اکسیژن (Oxygen)
P — فسفر (Phosphorus)
S — گوگرد (Sulphur)
مفاهیم پایه شیمی
ماده از اتمها تشکیل شده است و اتمها برای ایجاد مواد و ترکیبات به یکدیگر پیوند میخورند. پیچیدگی ماده با نحوه سازماندهی و برهمکنش اتمها و مولکولها با یکدیگر برای تشکیل انواع مختلفی از مواد و ترکیبات با ساختارها و ویژگیهای منحصربهفرد تعیین میشود.
اتمها
اتم کوچکترین واحد سازنده همه مواد در طبیعت است و از نظر شیمیایی قابل تجزیه نیست. به مادهای که همه اتمهای آن از یک نوع باشند، «عنصر» گفته میشود. امروزه بیش از 100 عنصر شناخته شده است. از جمله آنها میتوان به اکسیژن، کربن، مس، هیدروژن و آهن اشاره کرد. با این حال، بیشتر مواد موجود در طبیعت از چندین عنصر مختلف تشکیل شدهاند. برای مثال، هوا مخلوطی از اکسیژن، نیتروژن، دیاکسید کربن و گازهای کمیاب است، در حالی که آب یک ترکیب شیمیایی از عناصر هیدروژن و اکسیژن به شمار میرود.
هسته اتم از پروتونها و نوترونها تشکیل شده است (شکل 2.1). پروتونها دارای بار مثبت واحد هستند، در حالی که نوترونها از نظر الکتریکی خنثیاند. الکترونهایی که به دور هسته میگردند، دارای بار منفیای هستند که از نظر مقدار برابر و از نظر علامت مخالف بار مثبت پروتونها است.
در یک اتم، تعداد پروتونها و الکترونها برابر است؛ بنابراین تعداد بارهای مثبت و منفی آن نیز برابر بوده و اتم از نظر الکتریکی خنثی است.
اتم بسیار کوچک است (شکل 2.2). تعداد اتمهای موجود در یک سکه مسی کوچک تقریباً برابر با تعداد ثانیههای یک هزار میلیون میلیون سال است! با این حال، بخش عمده اتم را فضای خالی تشکیل میدهد. اگر قطر هسته را برابر یک در نظر بگیریم، قطر کل اتم حدود 10,000 برابر آن است.
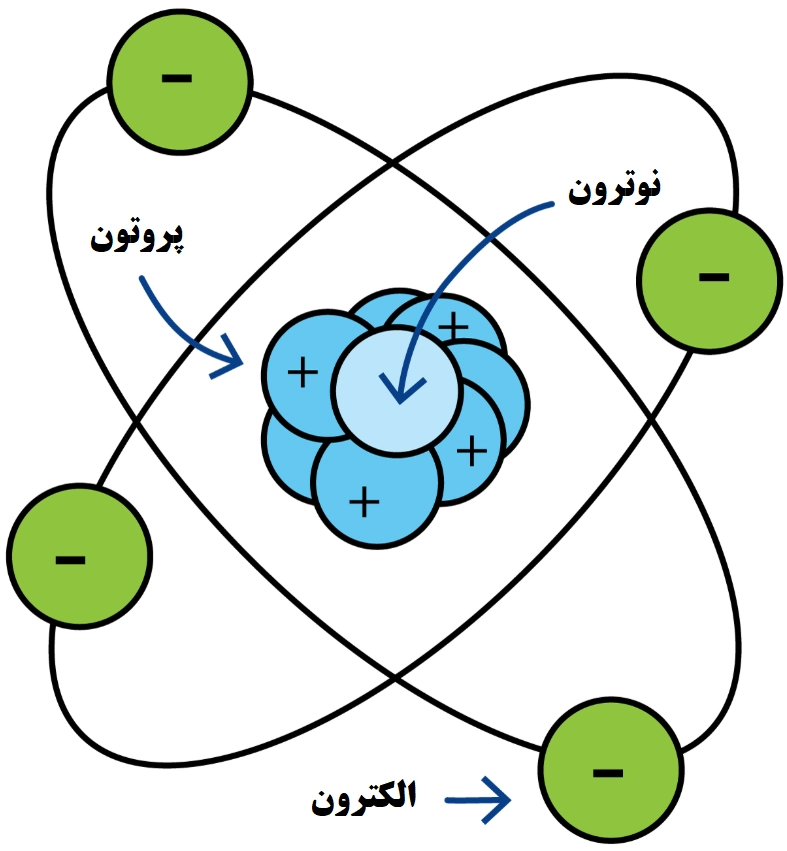 شکل 2.1- هسته اتم از پروتونها و نوترونها تشکیل شده است. الکترونها به دور هسته حرکت میکنند. _
_
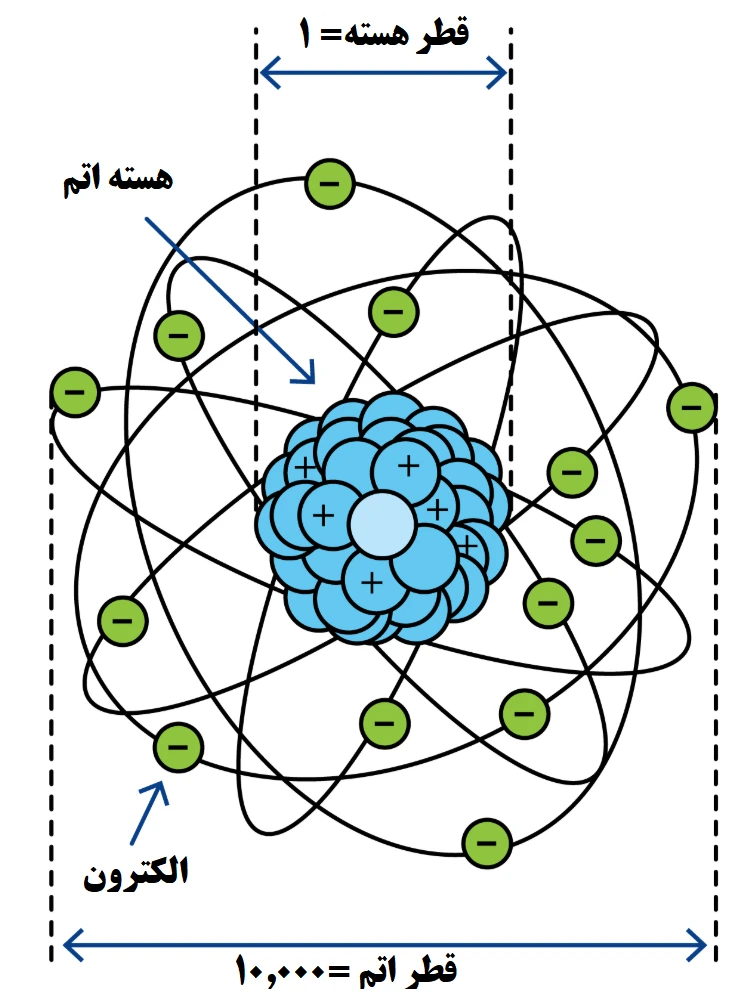
شکل 2.2 – هسته در مقایسه با اتم آنقدر کوچک است
که اگر اندازه آن به اندازه یک توپ تنیس بزرگ شود،پوسته
الکترونی بیرونی در فاصله 325 متری از مرکز قرار خواهد داشت.
یونها
اتم ممکن است یک یا چند الکترون از دست بدهد یا به دست آورد. چنین اتمی دیگر از نظر الکتریکی خنثی نیست و «یون» نامیده میشود. اگر یون تعداد الکترون بیشتری نسبت به پروتون داشته باشد، بار منفی دارد؛ اما اگر یک یا چند الکترون از دست داده باشد، بار آن مثبت است.
یونهای مثبت و منفی همواره همزمان وجود دارند؛ یعنی در محلولها به صورت کاتیونها (دارای بار مثبت) و آنیونها (دارای بار منفی) و در حالت جامد به صورت نمکها دیده میشوند. نمک طعام از یونهای سدیم (Na) و کلر (Cl) تشکیل شده و فرمول آن NaCl (سدیمکلرید) است.
مولکولها
اتمهای یک عنصر یا عناصر مختلف میتوانند با یکدیگر ترکیب شده و واحدهای بزرگتری را تشکیل دهند که به آنها «مولکول» گفته میشود. مولکولها سپس میتوانند مواد جامد، مانند آهن (Fe) یا ماسه سیلیسی (SiO2)، مایعات، مانند آب (H2O)، یا گازها، مانند هیدروژن (H2)، را تشکیل دهند. اگر مولکول عمدتاً از اتمهای کربن ©، هیدروژن (H2) و اکسیژن (O2) تشکیل شده باشد، ترکیب حاصل «آلی» نامیده میشود؛ یعنی از عناصر آلی تشکیل شده است. نمونهای از آن اسید لاکتیک (C3H6O3) است. این فرمول نشان میدهد که مولکول از سه اتم کربن، شش اتم هیدروژن و سه اتم اکسیژن تشکیل شده است.
تعداد اتمهای موجود در یک مولکول میتواند بسیار متفاوت باشد. برخی مولکولها از دو اتم متصل به هم تشکیل شدهاند و برخی دیگر از صدها اتم ساخته شدهاند.
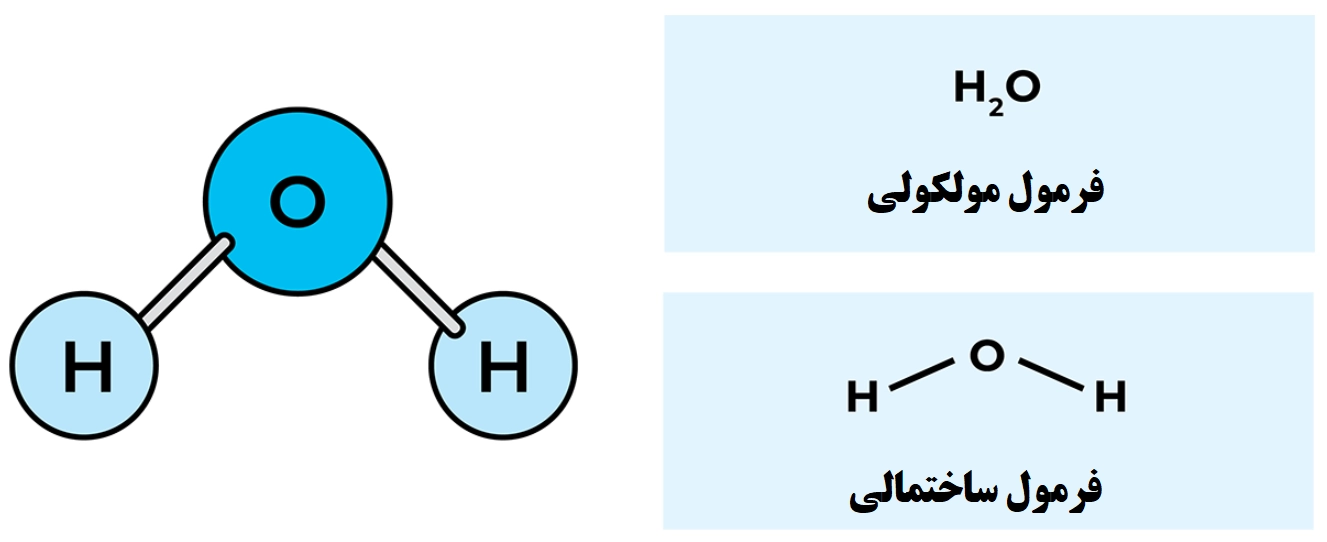
شکل 2.3 — سه روش برای نشاندادن یک مولکول آب
ویژگیهای فیزیکوشیمیایی پایه شیر گاو
شیر گاو یک سامانه پیچیده چندپراکنده است که تقریباً از 87 درصد آب و 13 درصد ماده خشک تشکیل شده است (جدول 2.1). ماده خشک موجود در شیر بهصورت محلول یا معلق در آب حضور دارد و بر حسب نوع مواد جامد، اندازه ذرات آنها و میزان تمایل متقابل اجزا یا درجه همخواهی میان ترکیبات (جدول 2.2)، میتواند به شکلهای مختلفی از پراکنش یا مخلوط در فاز آبی ظاهر شود (شکل 2.4).
ترکیبات آلی عمدتا از کربن , اکسیژن و هیدروژن تشکیل شده اند. ترکیبات معدنی عمدتا از اتم های دیگر تشکیل شده اند.
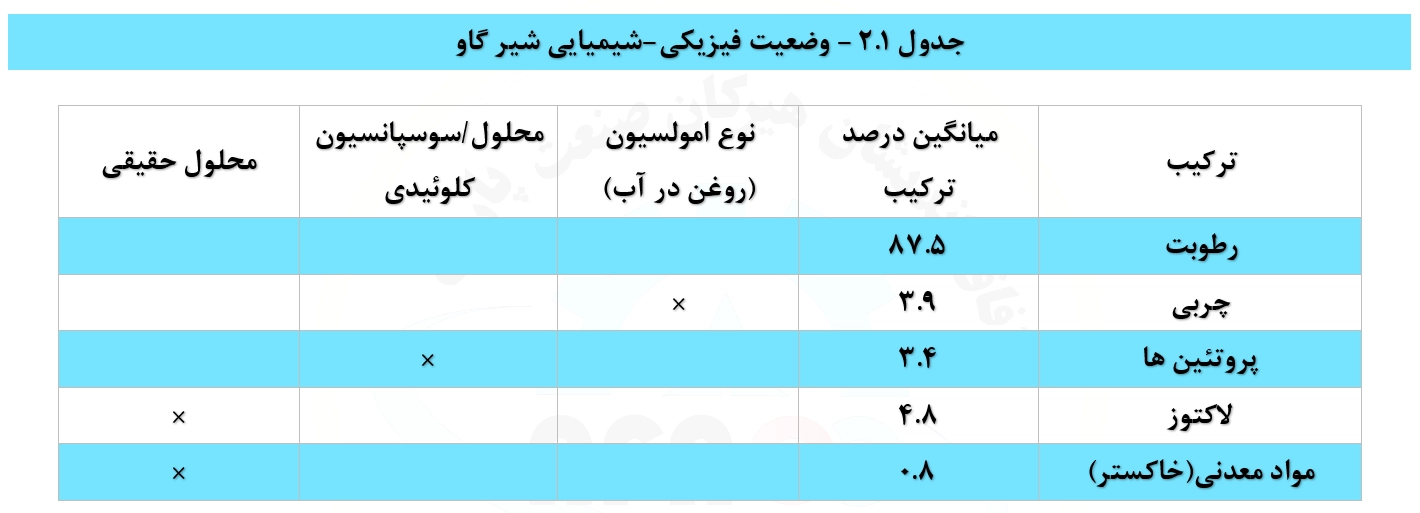
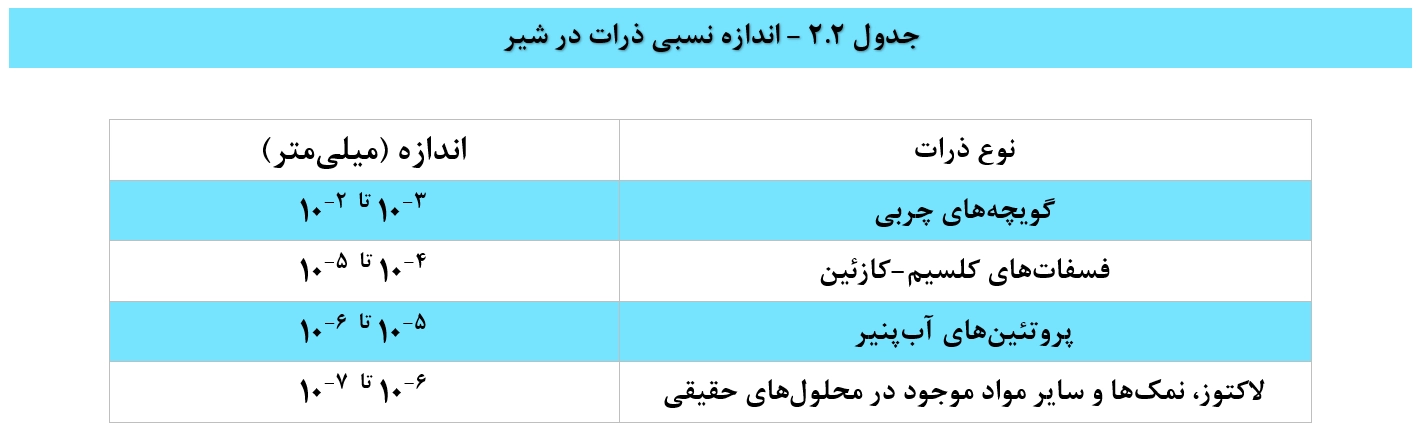
منبع: فرهنگ اصطلاحات لبنیات، جی.جی. دیویس
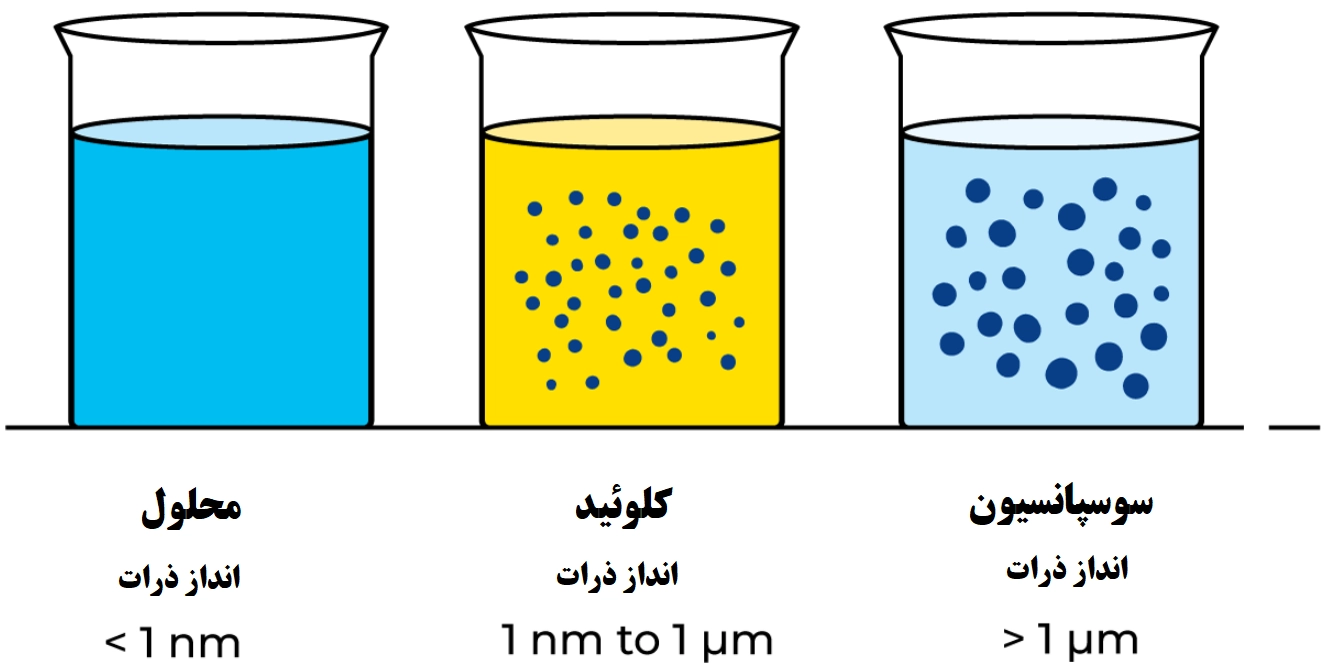
شکل ۲.۴ — انواع مختلف توزیع در فاز آبی
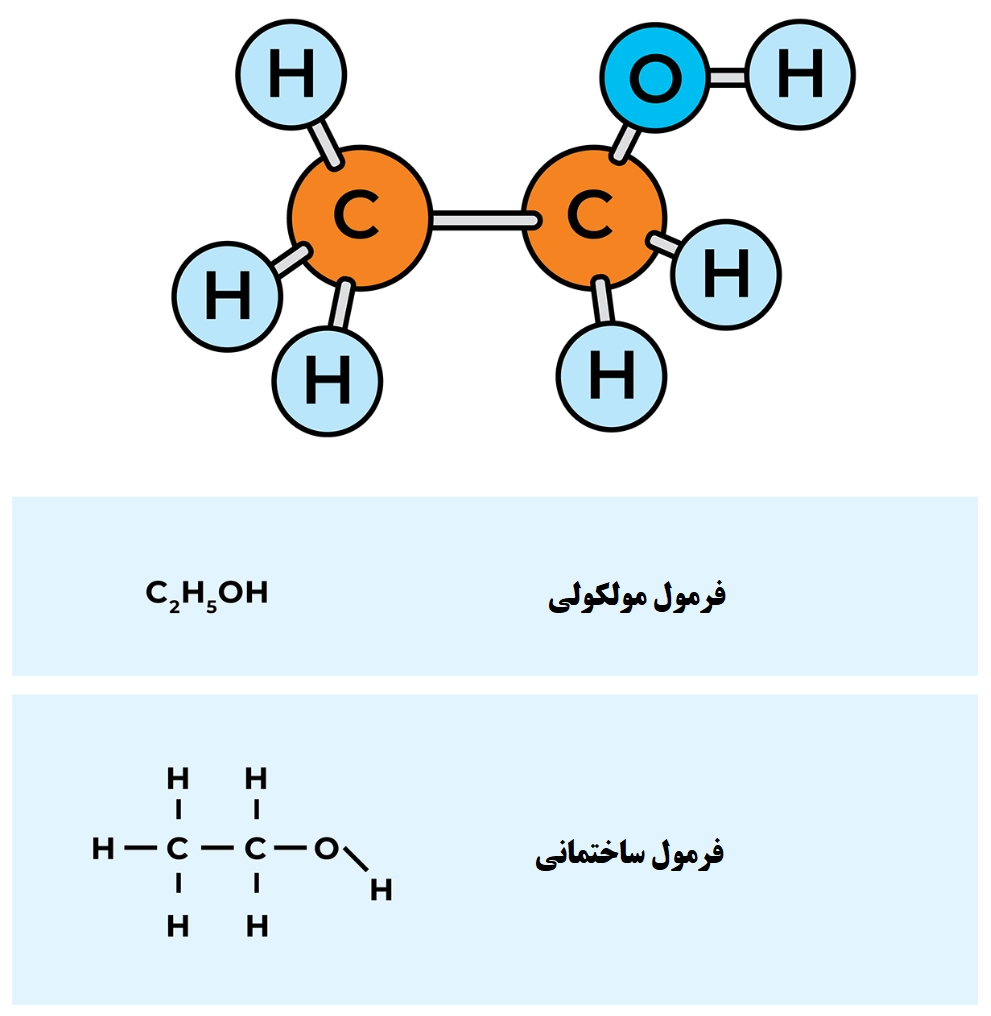
شکل ۲.۵- سه روش برای نمادگذاری (نمایش) مولکول اتیل الکل
تعاریف
محلول: مخلوطی مایع است که در آن جزء کممقدارتر، یعنی حلشونده، بهطور یکنواخت درون جزء عمدهتر، یعنی حلال، پخش شده است. برای مثال، نمکِ حلشده در آب، یک محلول نمکی ایجاد میکند.
سوسپانسیون: مخلوطی ناهمگن از ذرات جامد ریز است که در یک فاز مایع پراکندهاند، بهگونهای که در آن حل نمیشوند، بلکه به حالت معلق باقی میمانند؛ حتی اگر این ذرات از جنس ذرات جامدِ میکروسکوپی باشند.
امولسیون: نوعی سوسپانسیون از قطرات یک مایع در مایع دیگر است. شیر یک امولسیون روغن در آب (o/w) و کره یک امولسیون آب در روغن (w/o) است (شکل 2.6). مایعِ بهصورت ریزتقسیمشده را فاز پراکنده و مایع دیگر را فاز پیوسته مینامند.
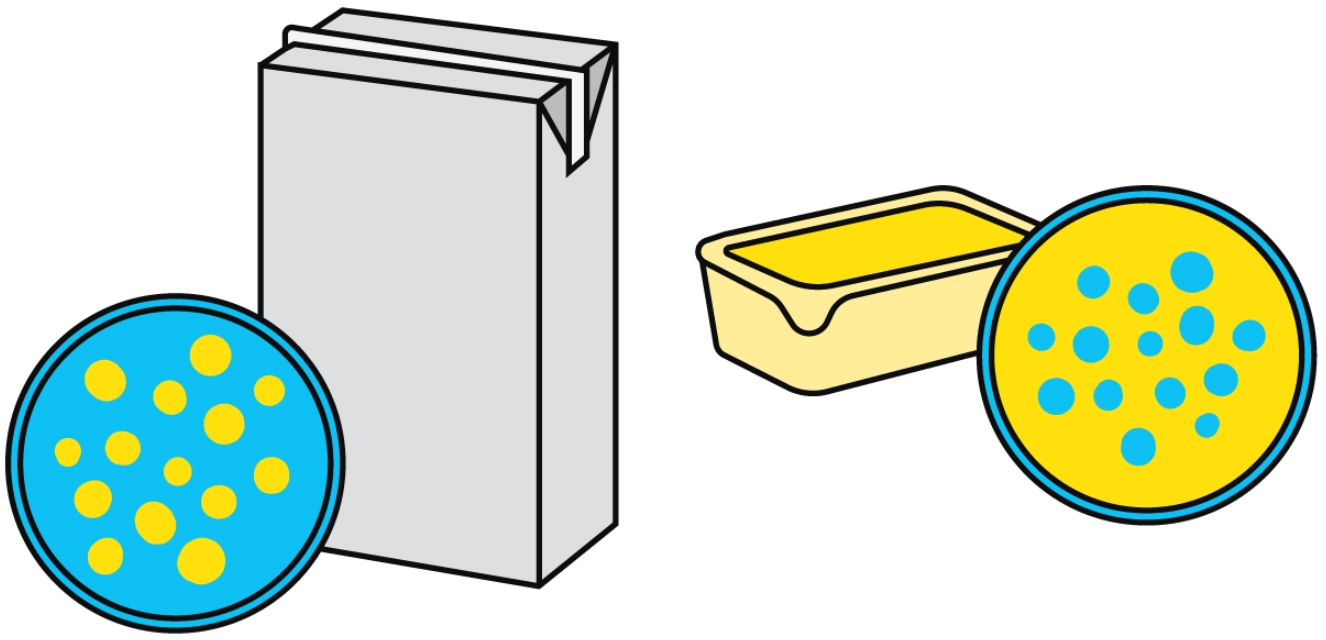
شکل ۲.۶ — امولسیونهای روغن در آب و آب در روغن، مشاهدهشده در شیر و کره
محلول کلوئیدی: هنگامی که ماده در حالتی از پراکندگی قرار داشته باشد که از نظر اندازه ذرات و رفتار، بین محلول حقیقی (مانند شکر در آب) و سوسپانسیون (مانند گچ در آب) واسطه باشد، گفته میشود که آن ماده بهصورت محلول کلوئیدی یا سوسپانسیون کلوئیدی وجود دارد.
ویژگیهای شاخص یک کلوئید عبارتاند از:
– اندازه کوچک ذرات
– بار الکتریکی
– تمایل ذرات به مولکولهای آب
در شیر، پروتئینهای آبپنیر به صورت یک محلول کلوئیدی و کازئینها که نسبتاً بزرگتر هستند به صورت یک سوسپانسیون کلوئیدی حضور دارند (شکل ۲.۷ را ببینید).
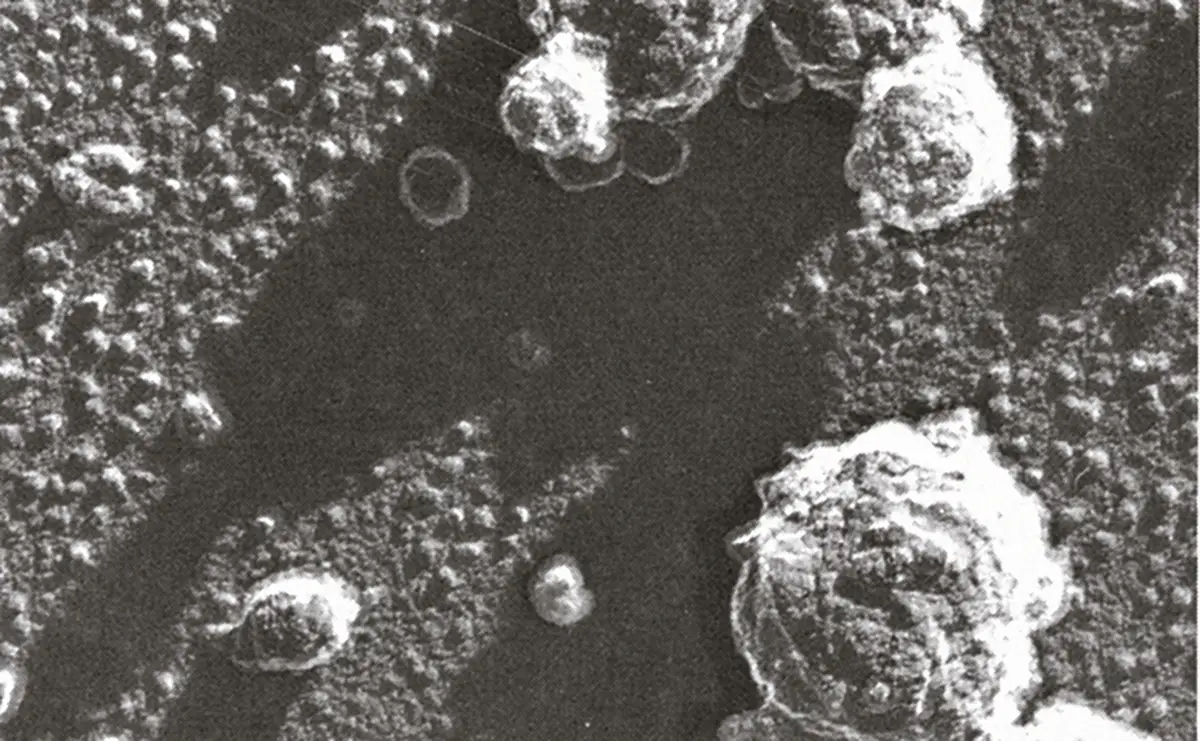
شکل ۲.۷ – پروتئینهای شیر را میتوان با استفاده از میکروسکوپ الکترونی مشاهده کرد.
منبع: میلو سلاو کالاب، ساختار مواد غذایی، ۱۹۹۳
موادی مانند نمکها با تغییر در پیوند آب و در نتیجه کاهش حلالیت پروتئینها، موجب ناپایداری سامانههای کلوئیدی میشوند. عواملی مانند حرارت باعث بازشدن ساختار پروتئینهای آبپنیر و افزایش برهمکنش میان پروتئینها میشوند، و الکل نیز ممکن است با آبزدایی از ذرات بر این سامانهها اثر بگذارد.
محلولهای حقیقی: موادی که هنگام اختلاط با آب یا سایر مایعات، محلول حقیقی تشکیل میدهند، به دو دسته تقسیم میشوند:
محلولهای غیریونی: هنگامی که لاکتوز در آب حل میشود، تغییر مهمی در ساختار مولکولی لاکتوز رخ نمیدهد.
محلولهای یونی: هنگامی که نمک طعام در آب حل میشود، کاتیونها (+Na) و آنیونها (–Cl) در آب پراکنده شده و یک الکترولیت تشکیل میدهند (شکل 2.8).
اسیدیته محلولها
هنگامی که یک اسید، مانند اسید هیدروکلریک (HCl)، با آب مخلوط میشود، یونهای هیدروژن یا پروتونها با بار مثبت (H+) آزاد میکند. این یونها بهسرعت به مولکولهای آب متصل میشوند و یون هیدرونیوم (H3O+) را تشکیل میدهند. هنگامی که یک باز (یعنی یک اکسید فلزی یا هیدروکسید) به آب افزوده میشود، یک محلول بازی یا قلیایی به وجود میآورد. با حل شدن باز، یونهای هیدروکسید (–OH) آزاد میشوند.
محلولی که تعداد یونهای هیدروکسید و هیدروژن آن برابر باشد، خنثی است (شکل 2.9).
محلولی که تعداد یونهای هیدروکسید آن بیشتر از یونهای هیدروژن باشد، قلیایی است (شکل 2.10).
محلولی که تعداد یونهای هیدروژن آن بیشتر از یونهای هیدروکسید باشد، اسیدی است (شکل 2.11).
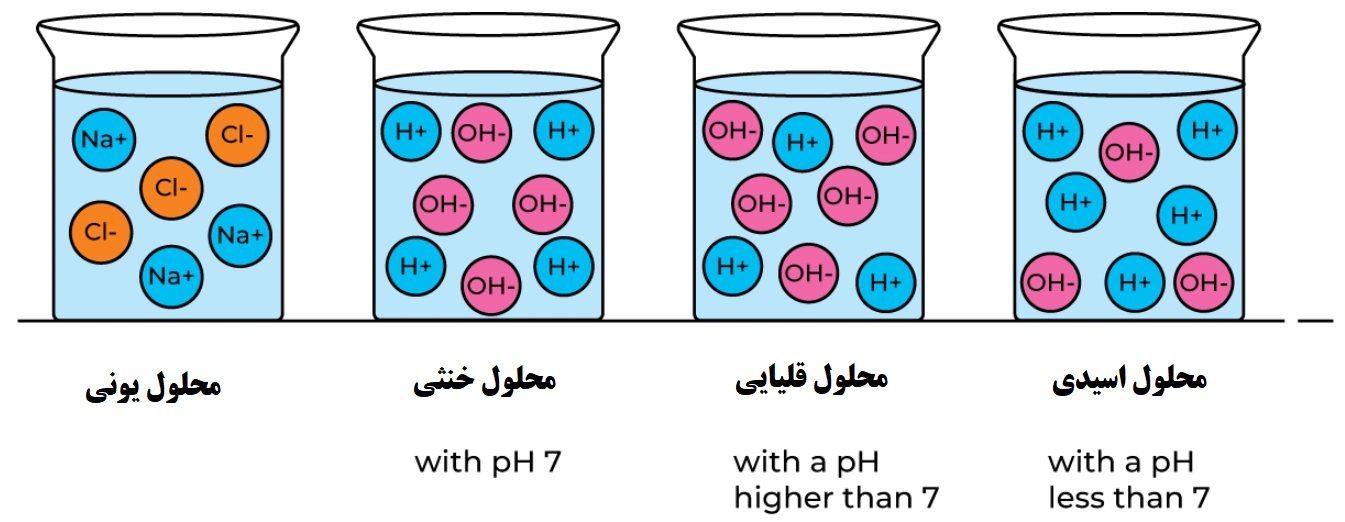
شکلهای ۲.۷ تا ۲.۱۱
PH
اسیدیته یک محلول به غلظت یونهای هیدروژن آن بستگی دارد. با این حال، این غلظت از یک محلول به محلول دیگر بسیار متفاوت است. برای نشان دادن غلظت یون هیدروژن از نماد pH استفاده میشود.
از دیدگاه ریاضی، PH بهصورت لگاریتم منفیِ غلظت یون هیدروژن با پایه 10 تعریف میشود؛ به این صورت که غلظت بر حسب مولاریته بیان میگردد:
| PH = – log [H+] |
این تعریف در دمای 25 درجه سانتیگراد به مقیاس زیر منجر میشود:
PH > 7 محلول قلیایی (بازی)
PH = 7 محلول خنثی
PH < 7 محلول اسیدی
خنثیسازی
هنگامی که یک اسید با یک باز (قلیایی) مخلوط میشود، یونهای هیدروژن و هیدروکسید با یکدیگر واکنش داده و آب را تشکیل میدهند. اگر اسید و باز با نسبتهای معین با هم مخلوط شوند، مخلوط حاصل خنثی خواهد بود؛ به این معنا که هیچ مقدار اضافی از یونهای هیدروژن یا هیدروکسید وجود نخواهد داشت و pH آن برابر با ۷ خواهد بود. این فرآیند، «خنثیسازی» نامیده میشود و فرمول شیمیایی آن به این صورت است:
| H3O+ + OH– = 2H2O |
خنثیسازی منجر به تشکیل نمک میشود. هنگامی که اسید هیدروکلریک (HCl) با سدیم هیدروکسید (NaOH) مخلوط میشود، این دو با یکدیگر واکنش داده و سدیم کلرید (NaCl) و آب (H2O) را تشکیل میدهند. نمکهای اسید هیدروکلریک، «کلریدها» نامیده میشوند و سایر نمکها نیز به همین ترتیب بر اساس اسیدهای سازندهشان نامگذاری میشوند: اسید سیتریک «سیتراتها» را تشکیل میدهد، اسید نیتریک «نیتراتها» را تولید میکند و به همین ترتیب ادامه مییابد.
پدیده انتشار (دیفیوژن)
ذرات موجود در یک محلول – اعم از یونها، مولکولها یا کلوئیدها – تحت تأثیر نیروهایی قرار دارند که موجب مهاجرت (انتشار) آنها از نواحی با غلظت بالا به نواحی با غلظت پایین میشود. فرآیند انتشار تا زمانی ادامه مییابد که کل محلول همگن شده و غلظت در سراسر آن یکسان شود. حل شدن شکر در یک فنجان قهوه، نمونهای از پدیده انتشار است؛ شکر بهسرعت در نوشیدنی داغ حل میشود و مولکولهای آن تا زمان توزیع یکنواخت در نوشیدنی، منتشر میگردند.
سرعت انتشار به سرعت حرکت ذرات بستگی دارد که این سرعت نیز به نوبه خود تحت تأثیر دما، اندازه ذرات و اختلاف غلظت میان بخشهای مختلف محلول قرار میگیرد.
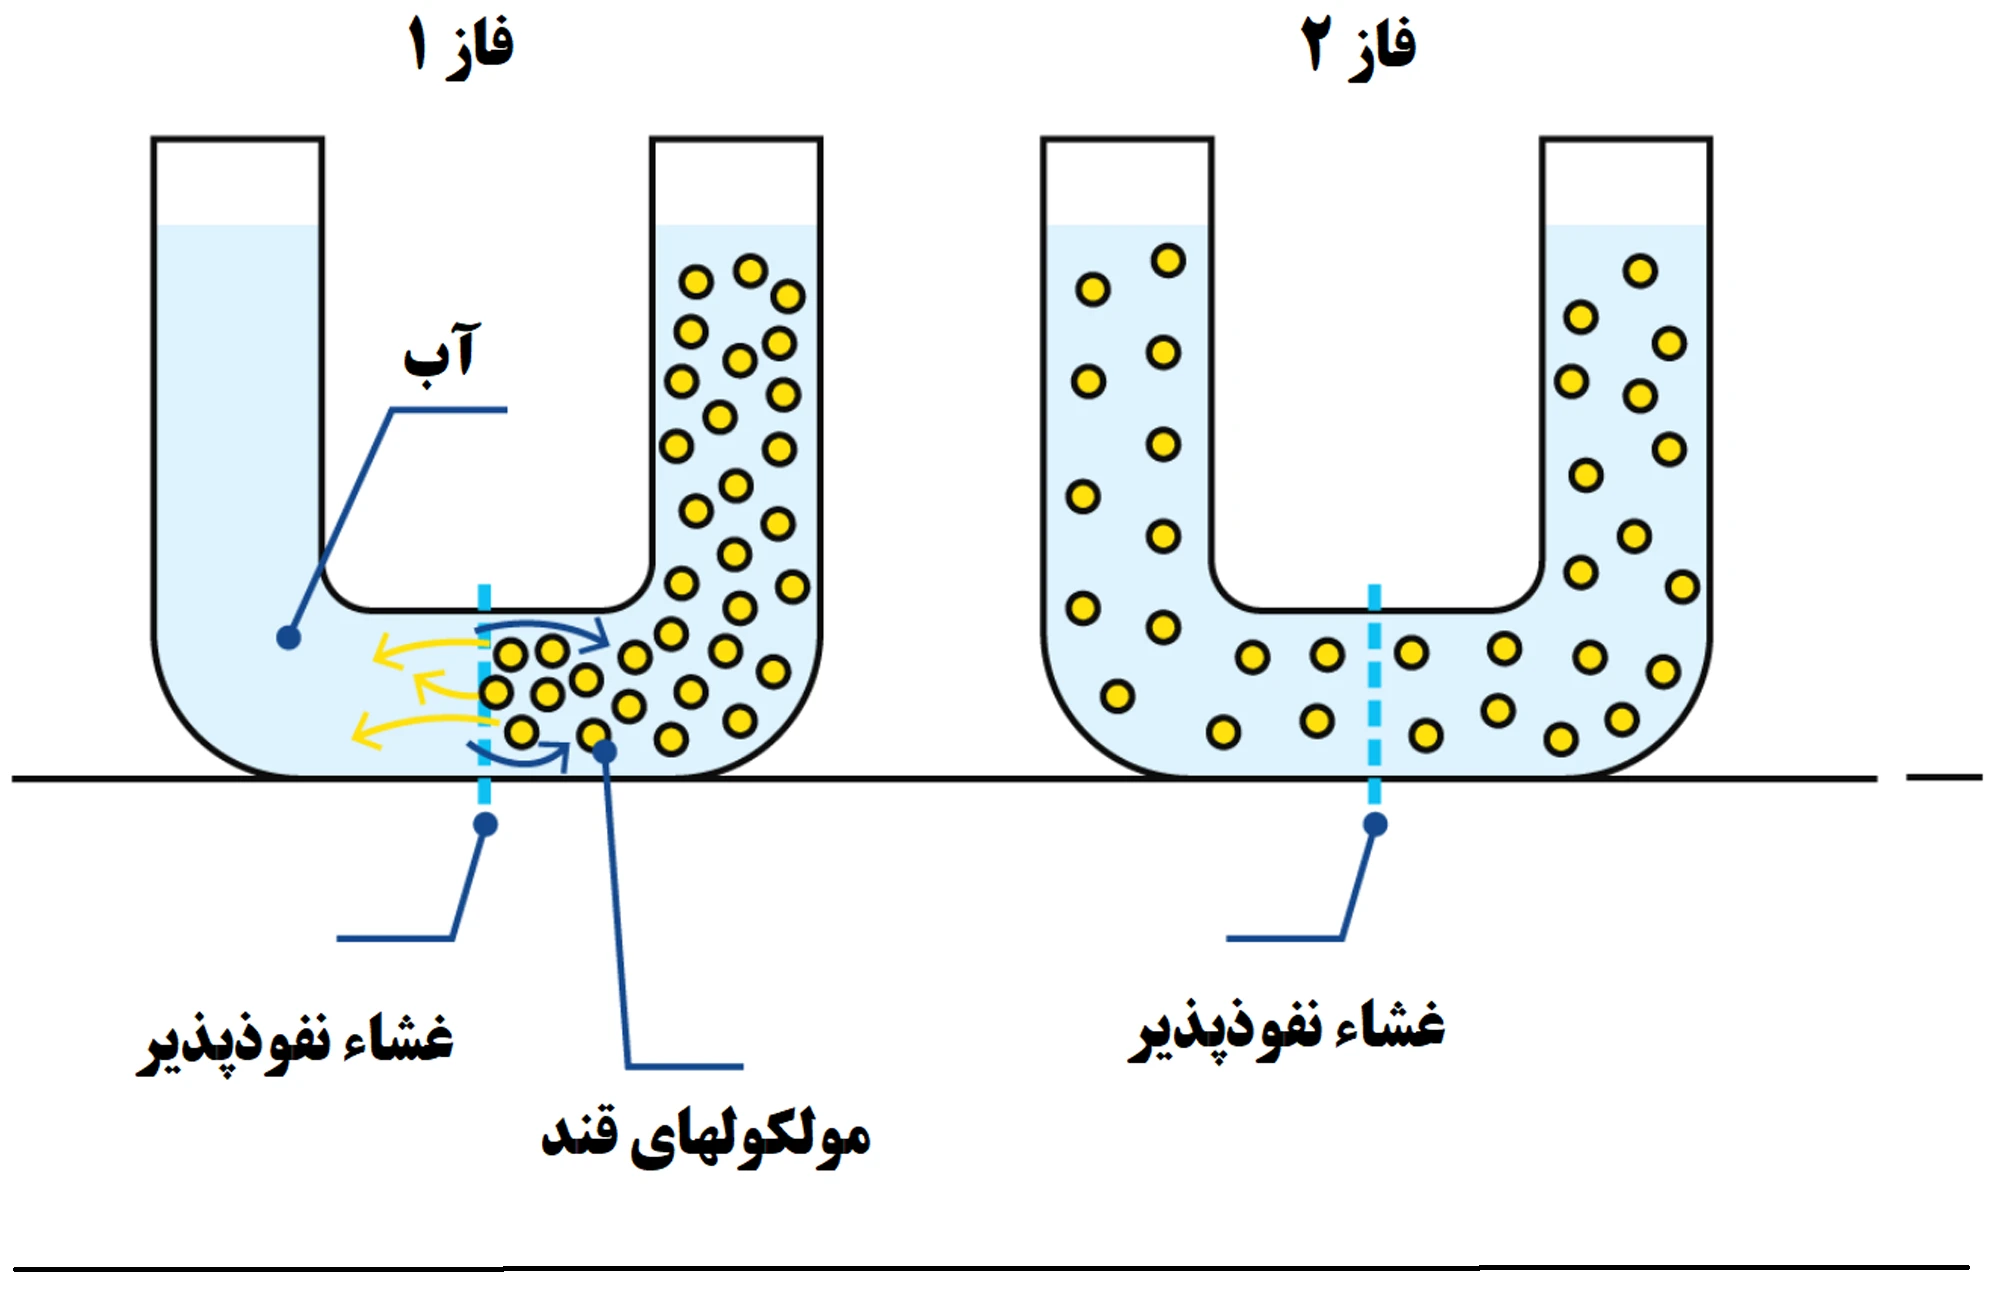
شکل ۲.۱۲ — مولکولهای قند از میان غشای نفوذپذیر نفوذ میکنند و مولکولهای آب
در جهت مخالف انتشار مییابند تا غلظت محلول را به تعادل برسانند.
شکل 2.12 اصل فرآیند انتشار را نشان میدهد. لوله U‑شکل بهوسیله یک غشای تراوا به دو بخش تقسیم شده است. سپس شاخه سمت چپ با آب و شاخه سمت راست با یک محلول قند پر میشود؛ مولکولهای قند این محلول قادرند از غشا عبور کنند. پس از مدتی، در اثر پدیده انتشار، غلظت در دو سوی غشا برابر میشود.
اسمز
اسمز اصطلاحی است که برای توصیف جریان خودبهخودی آب خالص به درون یک محلول آبی، یا حرکت آب از محلول رقیقتر به محلول غلیظتر، در صورتی که این دو بهوسیله یک غشای مناسب از یکدیگر جدا شده باشند، به کار میرود. پدیده اسمز را میتوان با مثالی که در شکل 2.13 نشان داده شده است توضیح داد. لولههای U‑شکل بهوسیله یک غشای نیمهتراوا به دو بخش تقسیم شدهاند. شاخه سمت چپ با آب و شاخه سمت راست با یک محلول قند پر شده است که مولکولهای قند آن قادر به عبور از غشا نیستند. در این حالت، مولکولهای آب از طریق غشا به درون محلول قند نفوذ میکنند و با رقیق کردن آن، غلظتش را کاهش میدهند. این فرایند را اسمز مینامند.
با رقیق شدن محلول قند، حجم آن افزایش مییابد. در نتیجه، همانگونه که در شکل 2.13 دیده میشود، سطح محلول بالا میآید و فشار هیدرواستاتیکی محلول بر غشا، که با a نشان داده شده است، از فشار آب در سمت دیگر بیشتر میشود. در این وضعیتِ عدم تعادل، تحت تأثیر فشار هیدرواستاتیکی بالاتر در محلول، مولکولهای آب در جهت مخالف نیز شروع به انتشار میکنند.
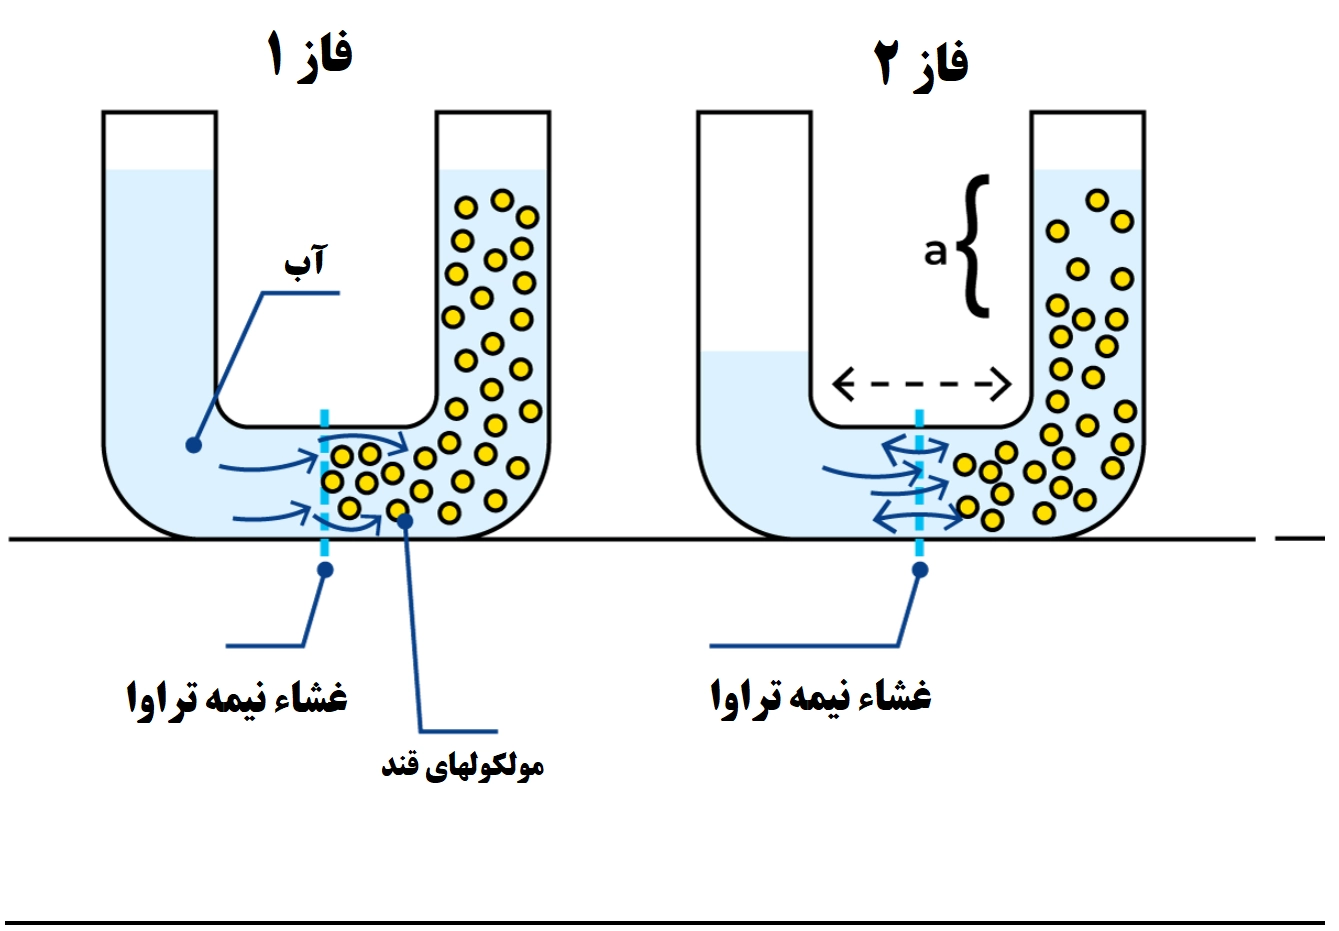
شکل ۲.۱۳ — مولکولهای قند بزرگتر از آن هستند که بتوانند از غشای نیمهتراوا عبور کنند.
تنها مولکولهای کوچک آب میتوانند برای متعادل کردن غلظت نفوذ کنند. «a» فشار اسمزی محلول است.
زمانی که انتشار آب در هر دو جهت یکسان شود، سامانه در حالت تعادل قرار میگیرد. اگر از ابتدا بر محلول قند فشار هیدرواستاتیکی وارد شود، ورود آب از طریق غشا کاهش مییابد. فشاری از نوع هیدرواستاتیکی که برای جلوگیری از برابر شدن غلظت در اثر انتشار آب به داخل محلول قند لازم است، فشار اسمزی محلول نامیده میشود.
اسمز معکوس
اگر فشاری بیشتر از فشار اسمزی به محلول قند اعمال شود، میتوان مولکولهای آب را وادار کرد که از محلول به سمت آب خالص منتشر شوند و بدینترتیب غلظت محلول افزایش یابد. این فرایند که در شکل 2.14 نشان داده شده است، بهطور تجاری برای تغلیظ محلولها به کار میرود و «اسمز معکوس» (Reverse Osmosis یا RO) نامیده میشود.
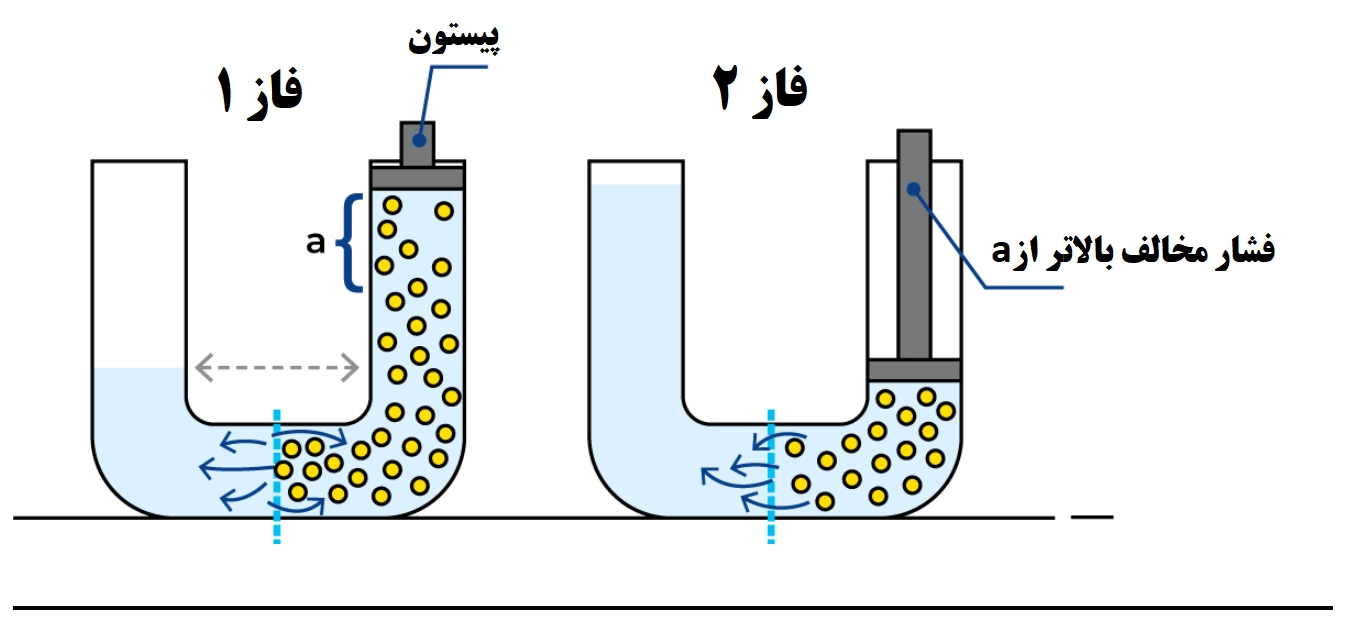
شکل ۲.۱۴ — اگر فشاری بیشتر از فشار اسمزی به محلول قند اعمال شود، مولکولهای آب نفوذ میکنند و محلول غلیظتر میشود.
دیالیز
دیالیز روشی است که در آن از اختلاف غلظت بهعنوان نیروی محرک برای جداسازی ذرات بزرگ از ذرات کوچک در یک محلول، برای مثال پروتئینها از نمکها، استفاده میشود. محلولی که باید تیمار شود، در یک سوی غشا قرار داده میشود و یک حلال (آب) در سوی دیگر آن قرار میگیرد. غشا دارای منافذی با قطری است که به مولکولهای کوچک نمک اجازه عبور میدهد، اما برای عبور مولکولهای پروتئین بسیار کوچک است؛ همانگونه که در شکل 2.15 نشان داده شده است. سرعت انتشار با اختلاف غلظت تغییر میکند، بنابراین میتوان دیالیز را با تعویض مکرر حلال در سمت دیگر غشا سرعت بخشید.
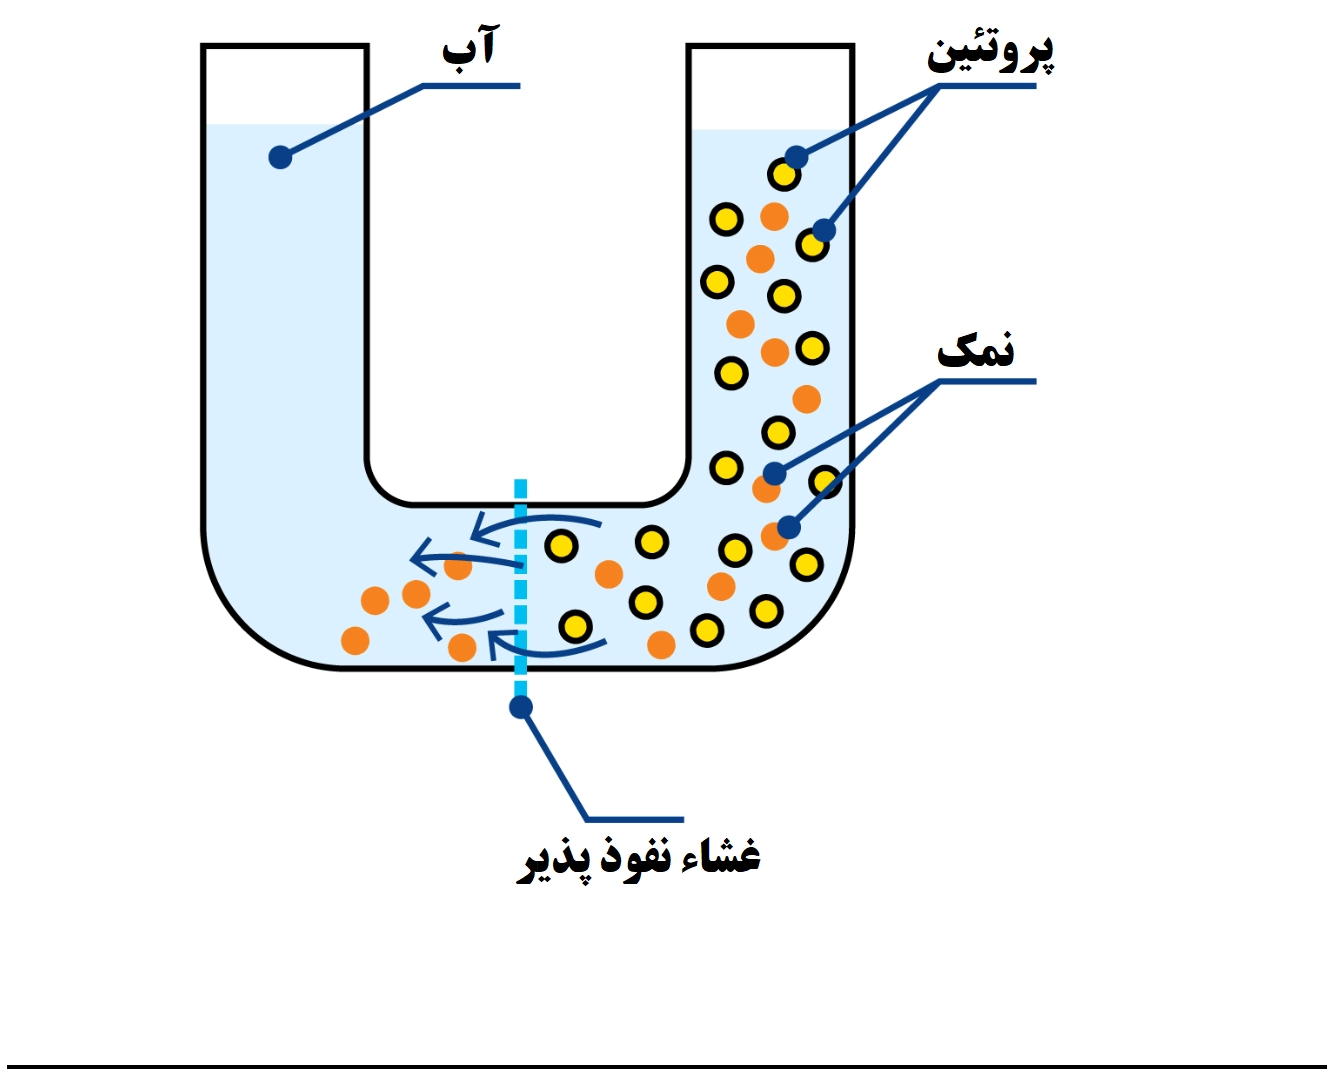
شکل ۲.۱۵ — رقیق کردن محلول در یک طرف غشا، در حالی که مولکولهای کوچک از آن عبور میکنند، باعث تغلیظ مولکولهای بزرگ میشود.
ترکیب شیمیایی شیر گاو
میزان اجزای اصلی مختلف در شیر میتواند بین گاوهایی از نژادهای گوناگون و حتی بین گاوهای انفرادی از یک نژاد مشابه بهطور قابلتوجهی متفاوت باشد. ازاینرو، برای این تغییرات تنها میتوان مقادیر حد (محدوده تغییرات) را بیان کرد. ارقام ارائهشده در جدول 2.3 صرفاً به عنوان نمونه مطرح شدهاند.
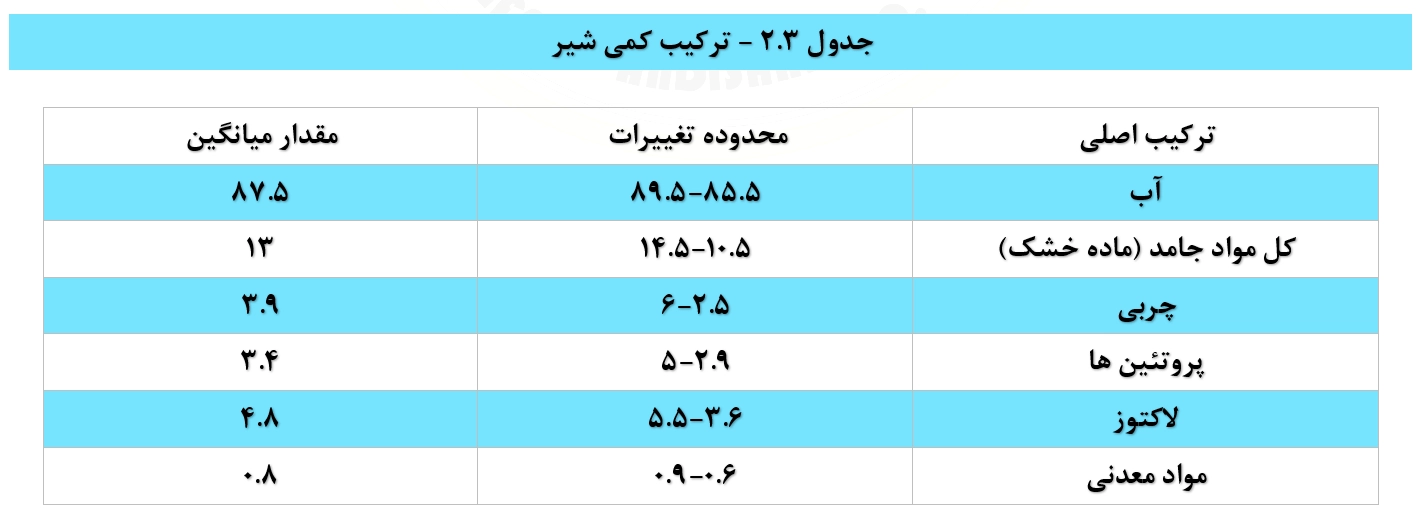
علاوه بر «کل مواد جامد»، در بحث ترکیب شیر از اصطلاح مواد جامد بدون چربی (Solids-Non-Fat; SNF) نیز استفاده میشود. SNF برابر است با مقدار کل مواد جامد منهای مقدار چربی. بنابراین، بر اساس میانگینهای جدول 2.3، مقدار متوسط SNF بهصورت زیر خواهد بود:
13.0−3.9=9.1%
PH شیر طبیعی معمولاً در بازه 6.6 تا 6.8 قرار دارد و رایجترین مقدار آن بهطور متوسط 6.7 است. این مقدار مربوط به اندازهگیری PH شیر در دمای حدود 25 درجه سانتیگراد است.
شیر و خامه نمونههایی از امولسیونهای چربی در آب (یا روغن در آب) هستند. چربی شیر بهصورت گویچهها یا قطرات کوچکی در سرم شیر پراکنده است (شکل 2.16). قطر این گویچهها در محدوده 0.1 تا 20 میکرومتر (هر میکرومتر برابر با 0.001 میلیمتر) قرار دارد. میانگین اندازه آنها 3 تا 4 میکرومتر است و در هر میلیلیتر از شیر، حدود 1010 عدد گویچه وجود دارد.
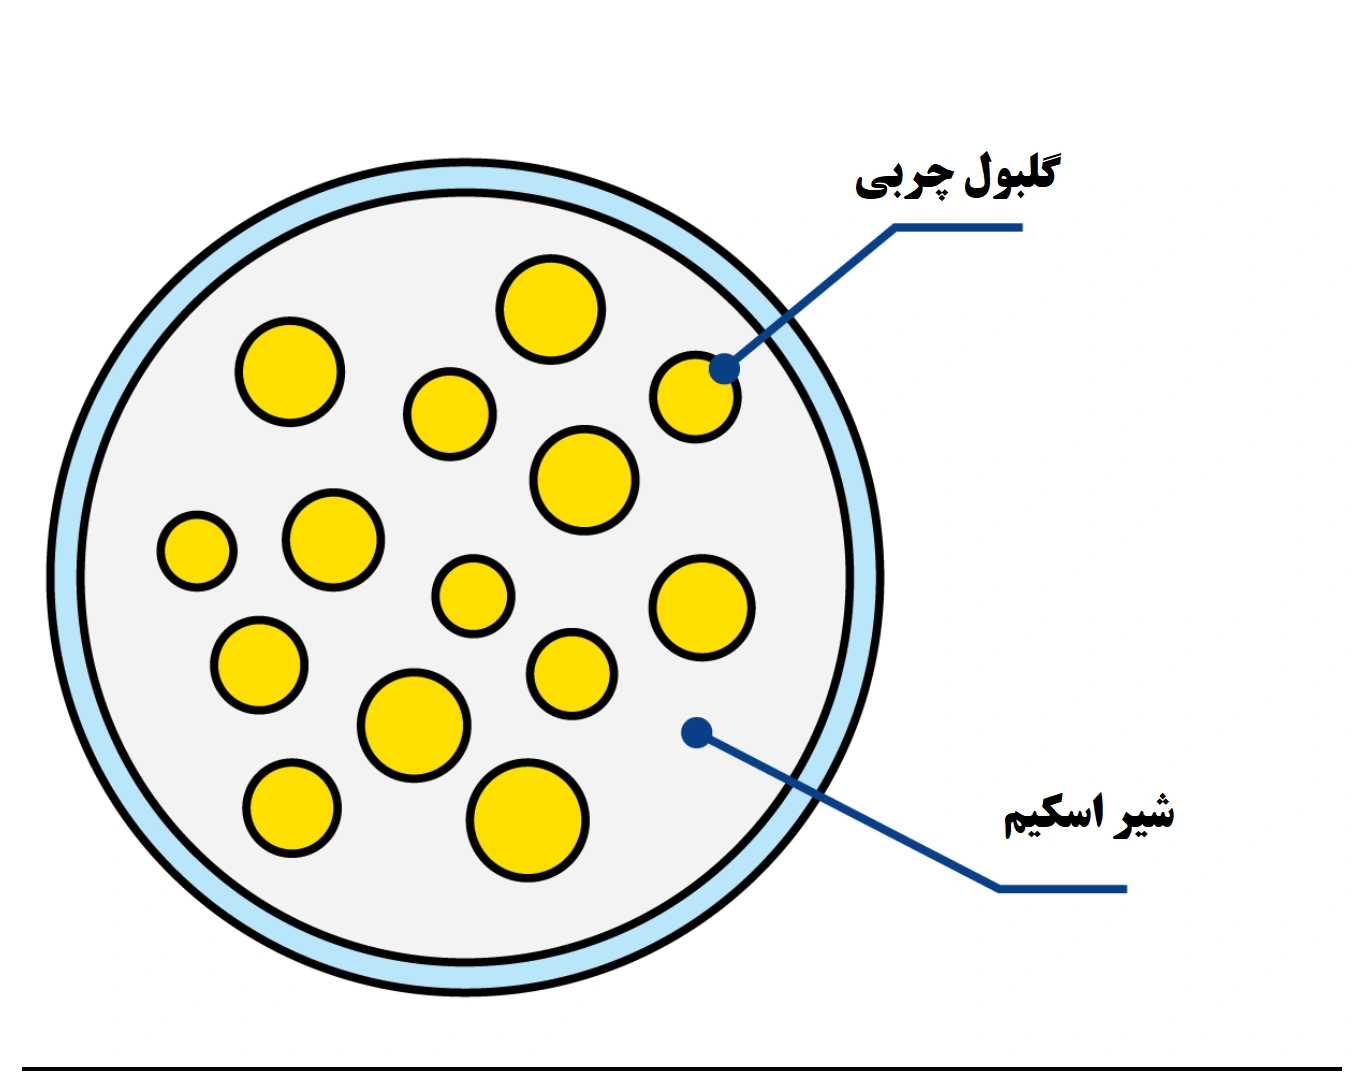
شکل ۲.۱۶ — نگاهی به درون شیر
امولسیون توسط یک غشای بسیار نازک با ضخامت تنها 10 تا 20 نانومتر( هر نانومتر برابر با 9- 10 متر است) پایدار میشود؛ این غشا گویچهها را احاطه کرده و ترکیب آن بسیار پیچیده است. چربی شیر از تریگلیسریدها (اجزای غالب) و دیگلیسریدها و مونوگلیسریدها، اسیدهای چرب، استرولها، کاروتنوئیدها (که رنگ زرد چربی را ایجاد میکنند) و ویتامینهای A، D، E و K تشکیل شده است . عناصر کممقدار نیز از اجزای فرعی آن بهشمار میروند. ترکیب یک گویچه چربی شیر در شکل 2.17 نشان داده شده است.
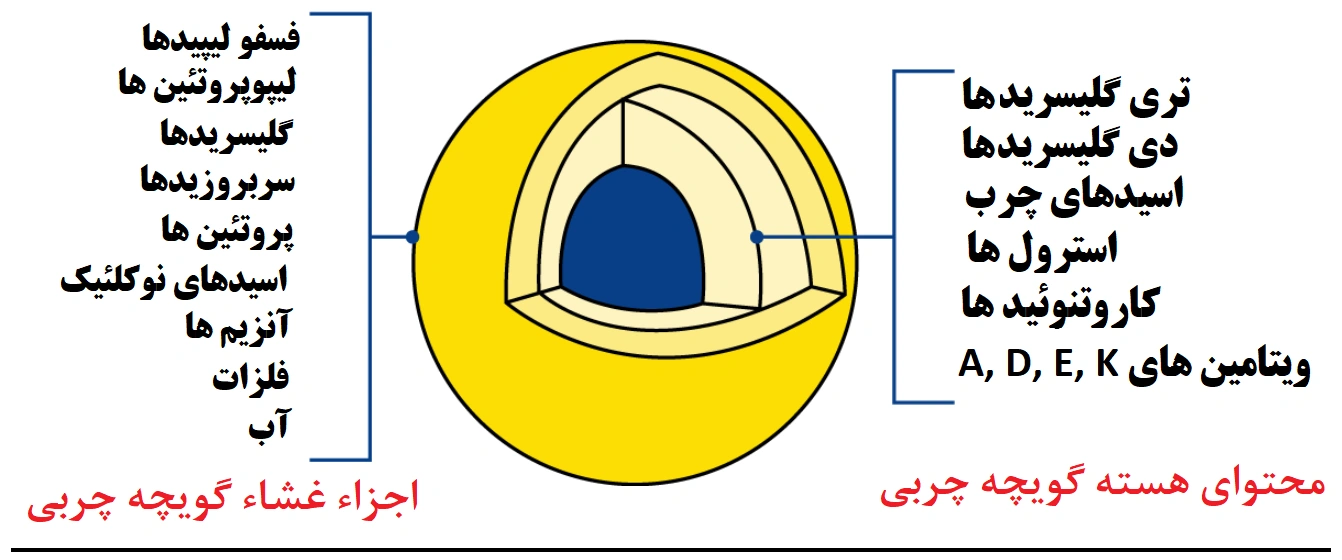
شکل ۲.۱۷ — ترکیب چربی شیر
اندازه : ۰.۱ تا ۲۰ میکرومتر (μm) – اندازه متوسط : ۳ تا ۴ میکرومتر
غشاء از فسفولیپیدها، لیپوپروتئینها، سربروزیدها، پروتئینها، اسیدهای نوکلئیک، آنزیمها، عناصر کممقدار (فلزات) و آبِ پیوندی تشکیل شده است. باید توجه داشت که ترکیب و ضخامت این غشا ثابت نیست، زیرا اجزا بهطور مداوم با سرم اطراف شیر در حال تبادل هستند.
از آنجا که گویچههای چربی نهتنها بزرگترین ذرات موجود در شیر، بلکه سبکترین آنها نیز هستند (چگالی در دمای 15.5 درجه سانتیگراد = 0.93 g/cm3 )، در صورتی که شیر مدتی در ظرفی ساکن بماند، تمایل دارند به سمت سطح صعود کنند (شکل 2.18).
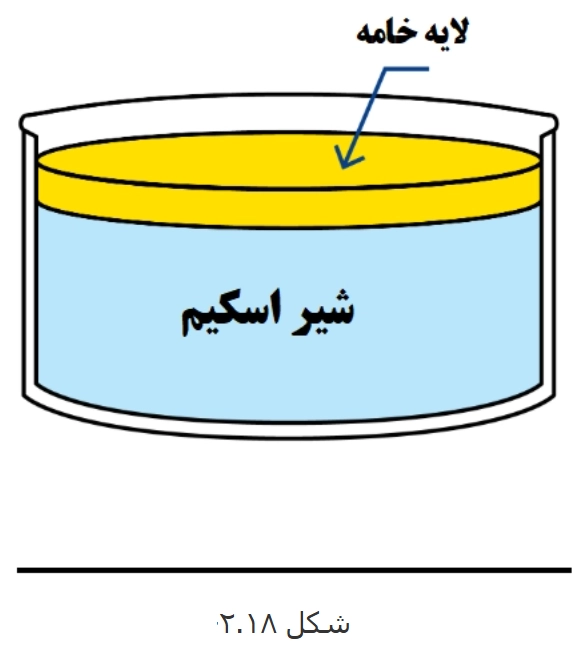
شکل ۲.۱۸- اگر شیر مدتی در ظرفی بدون حرکت باقی بماند، چربی آن بالا میآید و لایهای از خامه را در سطح تشکیل میدهد.
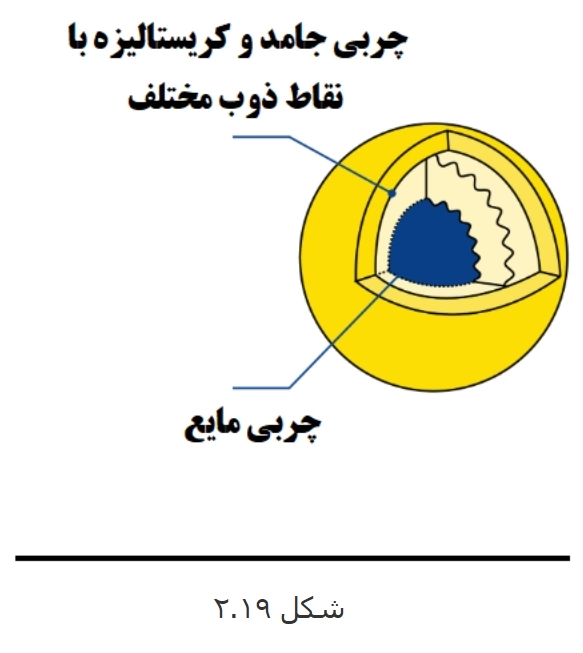
_شکل ۲.۱۹ – نمای مقطعی از یک گویچه چربی
سرعت صعود گویچهها از قانون استوکس پیروی میکند، اما به دلیل اندازه کوچک گویچههای چربی، فرآیند خامهبندی کند است. با این حال، جداسازی خامه میتواند بهوسیله تجمع گویچههای چربی تحت تأثیر پروتئینی به نام اَگلوتینین تسریع شود. این تجمعها بسیار سریعتر از گویچههای چربی منفرد به سطح صعود میکنند. تجمعها بهراحتی بر اثر حرارت یا تیمار مکانیکی از هم جدا میشوند. اگلوتینین در ترکیبهای دما-زمانی مانند 75 درجه سانتیگراد به مدت 2 دقیقه دناتوره میشود و در نتیجه، امکان تجمع از میان میرود.
ساختار شیمیایی چربی شیر
چربی شیر زمانی که شیر در دمای 37 درجه سانتیگراد از پستان خارج میشود، در حالت مایع قرار دارد. این بدان معناست که گویچههای چربی میتوانند در برابر تیمار مکانیکی ملایم ( مانند پمپاژ و جریان یافتن در لولهها ) بهراحتی تغییر شکل دهند، بدون آنکه از غشای خود جدا شوند.
همه چربیها به گروهی از مواد شیمیایی به نام استرها تعلق دارند که ترکیباتی حاصل از واکنش الکلها و اسیدها هستند. چربی شیر مخلوطی از استرهای مختلف اسیدهای چرب به نام تریگلیسریدها است که خود از الکلِ گلیسرول و اسیدهای چرب گوناگون تشکیل شدهاند. گلیسریدها تقریباً 99 درصد از چربی شیر را به خود اختصاص میدهند.
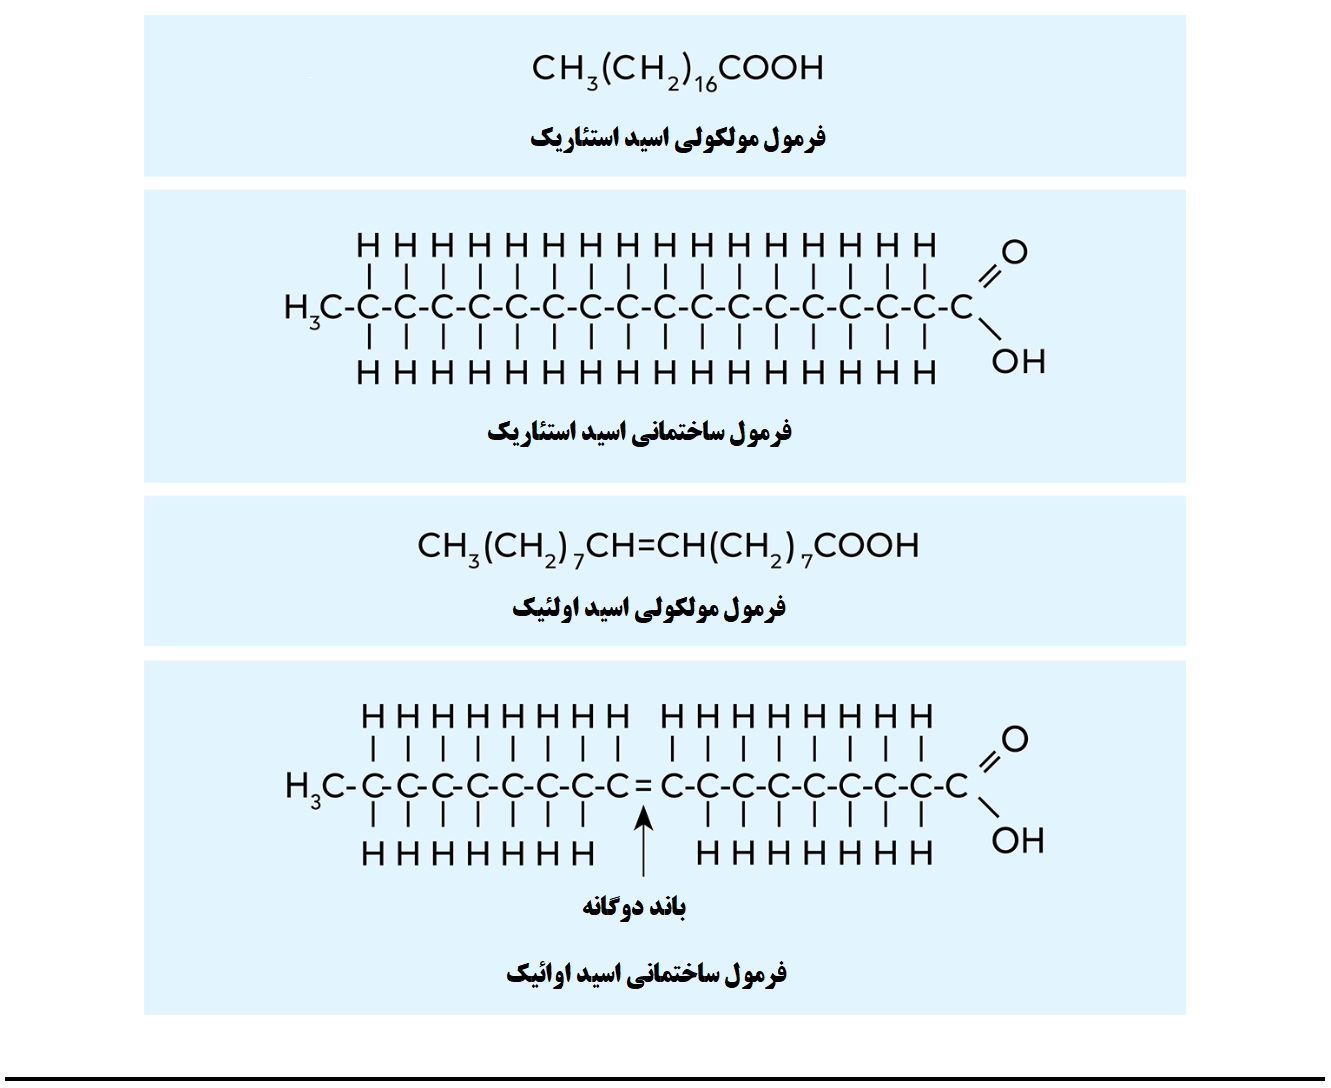
شکل ۲.۲۰- فرمولهای مولکولی و ساختاری اسید استئاریک و اسید اولئیک
یک مولکول اسید چرب از یک زنجیره هیدروکربنی و یک گروه کربوکسیل (با فرمول عمومی (RCOOH) تشکیل شده است. در اسیدهای چرب اشباع ، اتمهای کربن در طول زنجیره با پیوندهای یگانه به یکدیگر متصل شدهاند، در حالی که در اسیدهای چرب غیراشباع، یک یا چند پیوند دوگانه در زنجیره هیدروکربنی وجود دارد (شکل 2.20). هر مولکول گلیسرول میتواند به سه مولکول اسید چرب متصل شود و از آنجا که این سه اسید چرب لزوماً از یک نوع نیستند، تنوع گلیسریدهای مختلف در شیر بسیار زیاد است.
نقطه ذوب چربی
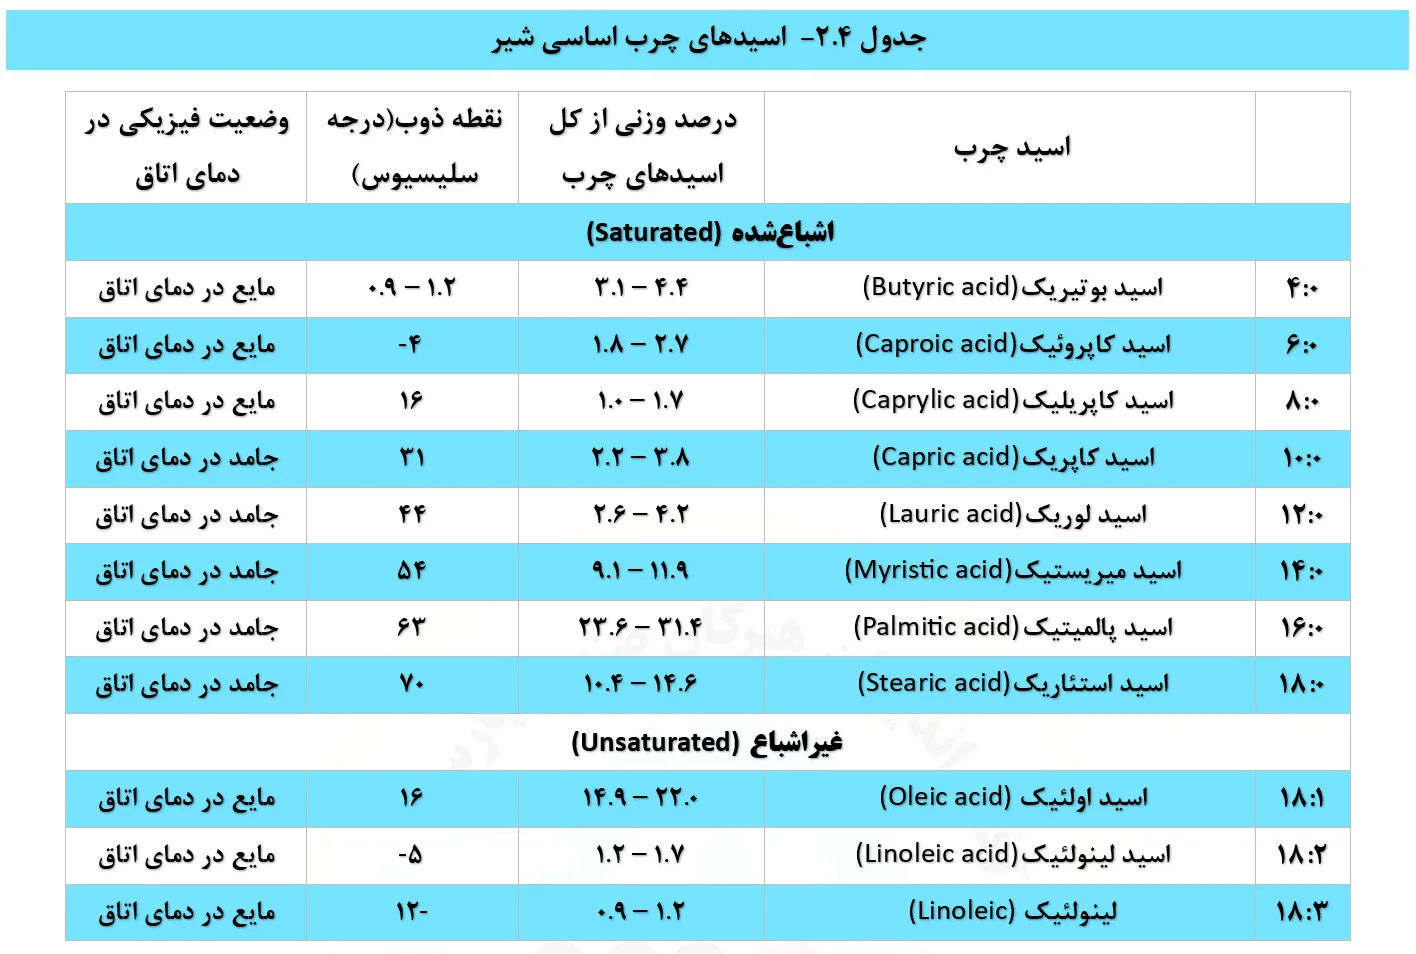
جدول 2.4 نشان میدهد که چهار اسید چرب فراوان در شیر عبارتاند از: اسید میریستیک، اسید پالمیتیک، اسید استئاریک و اسید اولئیک . سه مورد نخست در دمای اتاق جامد هستند و مورد آخر در این دما به حالت مایع است. همانطور که ارقام نشان میدهند، مقادیر نسبی اسیدهای چرب مختلف میتواند بهطور قابلتوجهی متغیر باشد. این تغییرات بر سفتی (سختی) چربی تأثیرگذار است. چربی حاوی مقادیر زیاد اسیدهای چرب با نقطه ذوب بالا (مانند اسید پالمیتیک)، سفت خواهد بود؛ از سوی دیگر، چربی دارای مقادیر زیاد اسید اولئیک با نقطه ذوب پایین، موجب تولید کره نرم میشود. تعیین دقیق مقدار تکتک اسیدهای چرب، صرفاً جنبه علمی و پژوهشی دارد. برای کاربردهای عملی، اندازهگیری یک یا چند شاخص (اندیس) که اطلاعات مشخصی درباره ترکیب چربی ارائه میدهند، کافی است.
عدد ید
اسیدهای چرب با تعداد یکسانی از اتمهای کربن و هیدروژن، اما با تعداد متفاوتی از پیوندهای یگانه و دوگانه، ویژگیهای کاملاً متفاوتی دارند. مهمترین و رایجترین روش برای بیان ویژگیهای اختصاصی آنها، اندازهگیری عدد ید (Iodine Value; IV) چربی است. عدد ید، درصد یدی را نشان میدهد که چربی قادر به جذب یا اتصال آن است. ید در پیوندهای دوگانه اسیدهای چرب غیراشباع جذب میشود. از آنجا که اسید اولئیک بهمراتب فراوانترین اسید چرب غیراشباعِ مایع در دمای اتاق است، عدد ید تا حد زیادی معیاری برای مقدار اسید اولئیک و در نتیجه برای نرمی چربی به شمار میآید.
- چربی با درصد بالایی از اسیدهای چرب با نقطه ذوب بالا، سفت (سخت) است.
- چربی با درصد بالایی از اسیدهای چرب با نقطه ذوب پایین، نرم است.
عدد ید چربی کره بهطور معمول بین 24 تا 46 متغیر است. این نوسانات تحت تأثیر نوع تغذیه گاوها تعیین میشود. چرا در مراتع سرسبز در فصل تابستان، منجر به افزایش مقدار اسید اولئیک میشود، به طوری که چربی شیرِ تابستانه نرم است (عدد ید بالا). برخی کنسانترههای علوفهای، مانند کنجاله آفتابگردان و کنجاله بذر کتان نیز چربی نرم تولید میکنند؛ در حالی که کنجاله نارگیل و روغن نخل (پالم) و همچنین برگ و ساقه سبزیجات ریشهای، موجب تولید چربی سفت میشوند. بنابراین، میتوان با انتخاب جیره غذایی مناسب برای گاوها، بر قوام (کنسیتانس) چربی شیر تأثیر گذاشت. شکل 2.21 نمونهای از چگونگی تغییرات عدد ید چربی شیر را در طول یک سال (در کشور سوئد) نشان میدهد.
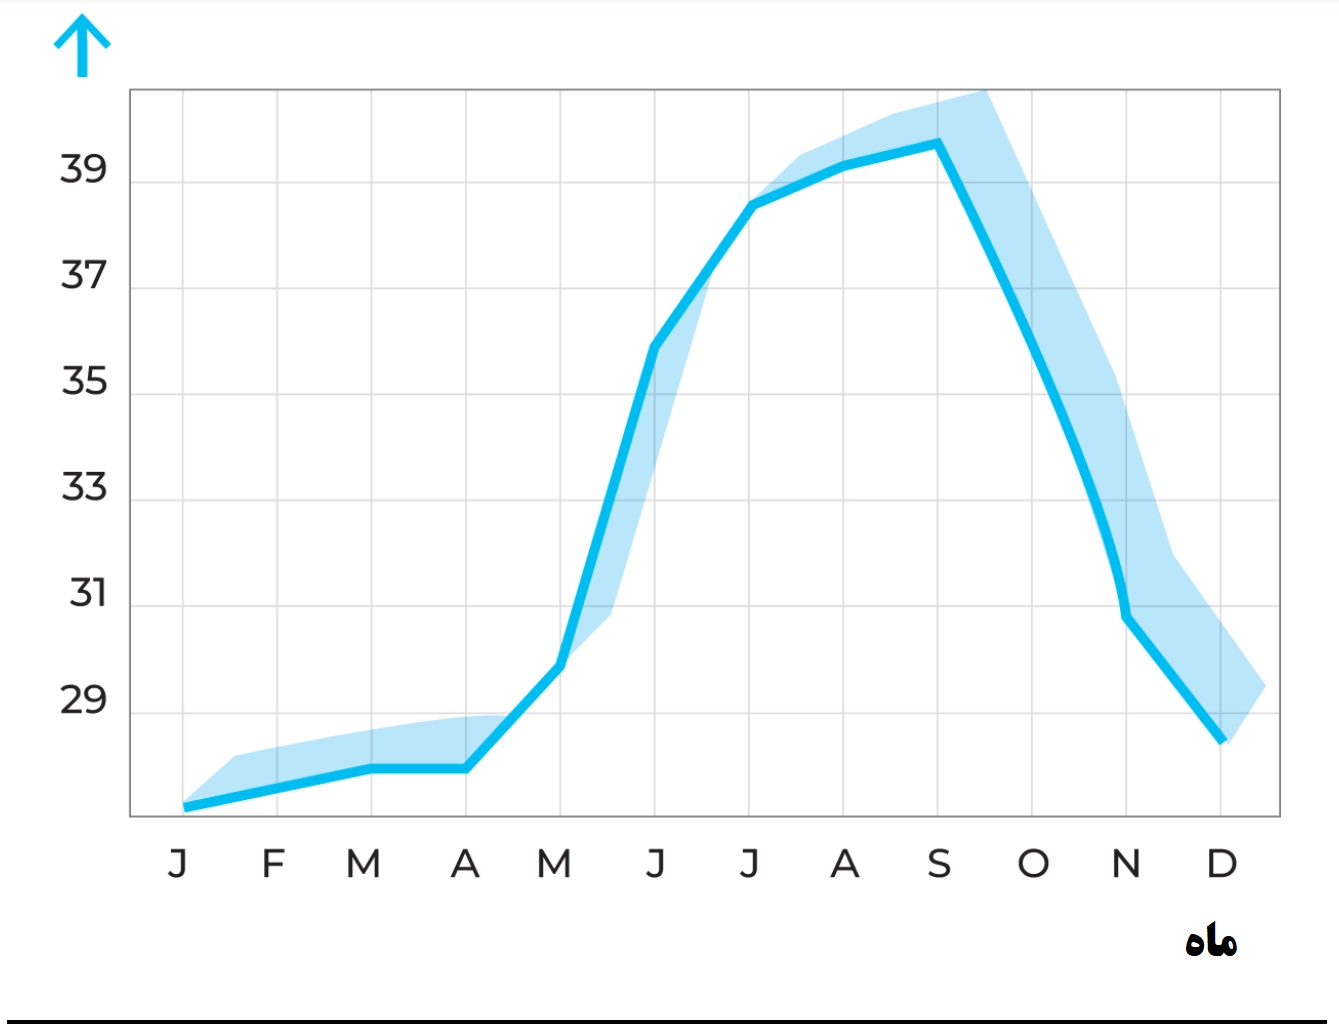
2.21.عدد یدی در زمانهای مختلف سال. عدد یدی معیاری برای تعیین میزان اسید اولئیک موجود در چربی است.
ضریب شکست
میزان اسیدهای چرب مختلف در چربی بر نحوه شکست نور توسط آن نیز تأثیر میگذارد. از اینرو، تعیین ضریب شکست چربی امری رایج است که میتوان از آن برای محاسبه عدد ید استفاده کرد. این روش، راهکاری سریع برای ارزیابی سختی (سفتی) چربی به شمار میرود.
رزونانس مغناطیسی هستهای (NMR)
به جای تجزیهوتحلیل عدد ید یا ضریب شکست، میتوان نسبت چربی اشباع به چربی غیراشباع را با استفاده از روش NMR پالسی تعیین کرد. در صورت تمایل، میتوان از یک ضریب تبدیل برای تبدیل مقدار NMR به عدد ید متناظر استفاده کرد. همچنین میتوان از روش NMR برای تعیین درجه تبلور چربی به عنوان تابعی از زمان تبلور بهره برد. نشان داده شده است که تبلور چربی در خامه ۴۰ درصد که از دمای ۶۰ درجه سانتیگراد تا ۵ درجه سانتیگراد خنک شده است، زمان زیادی طول میکشد. برای این کار به حداقل دو ساعت زمان تبلور نیاز است و نسبت چربی تبلوریافته، ۶۵ درصد از کل چربی خواهد بود (شکل 2.22 را ببینید).
همچنین اشاره شده است که تنها ۱۵ تا ۲۰ درصد از چربی، دو دقیقه پس از رسیدن به دمای ۵ درجه سانتیگراد تبلور مییابد. مقدار NMR چربی کره معمولاً بین ۳۰ تا ۴۱ متغیر است.
تبلور (کریستالیزاسیون) چربی
طی فرآیند تبلور، گویچههای چربی در وضعیت بسیار حساسی قرار دارند و حتی با تیمار مکانیکی ملایم نیز بهراحتی آسیب دیده و باز میشوند.
مطالعات با میکروسکوپ الکترونی نشان دادهاند که چربی بهصورت لایههای تکمولکولی کرویشکل تبلور مییابد (شکل 2.22 را ببینید). همزمان با این پدیده، جزءبهجزء شدن (فرکشنیشن) نیز رخ میدهد، بهگونهای که تریگلیسریدهای با بالاترین نقطه ذوب، پوستههای کروی بیرونی را تشکیل میدهند. از آنجا که چربی تبلوریافته حجم ویژهای کمتر از چربی مایع دارد، تنشهایی در داخل گویچهها ایجاد میشود که آنها را در طول دوره تبلور، بهشدت ناپایدار و مستعد شکستگی میسازد.
نتیجه این امر، رها شدن چربی مایع به درون سرم شیر است که منجر به تشکیل تودهها (کلوخهها) میشود؛ جایی که چربی آزاد، گویچههای آسیبندیده را به یکدیگر میچسباند (همان پدیدهای که در فرآیند تولید کره رخ میدهد). تبلور چربی گرمای تبلور (نهان) آزاد میکند که دمای محیط را تا حدی افزایش میدهد (خامه ۴۰ درصد که از دمای ۶۰ درجه سانتیگراد تا ۷ الی ۸ درجه سانتیگراد خنک شده است، در طول دوره تبلور حدود ۳ تا ۴ درجه سانتیگراد گرمتر میشود).
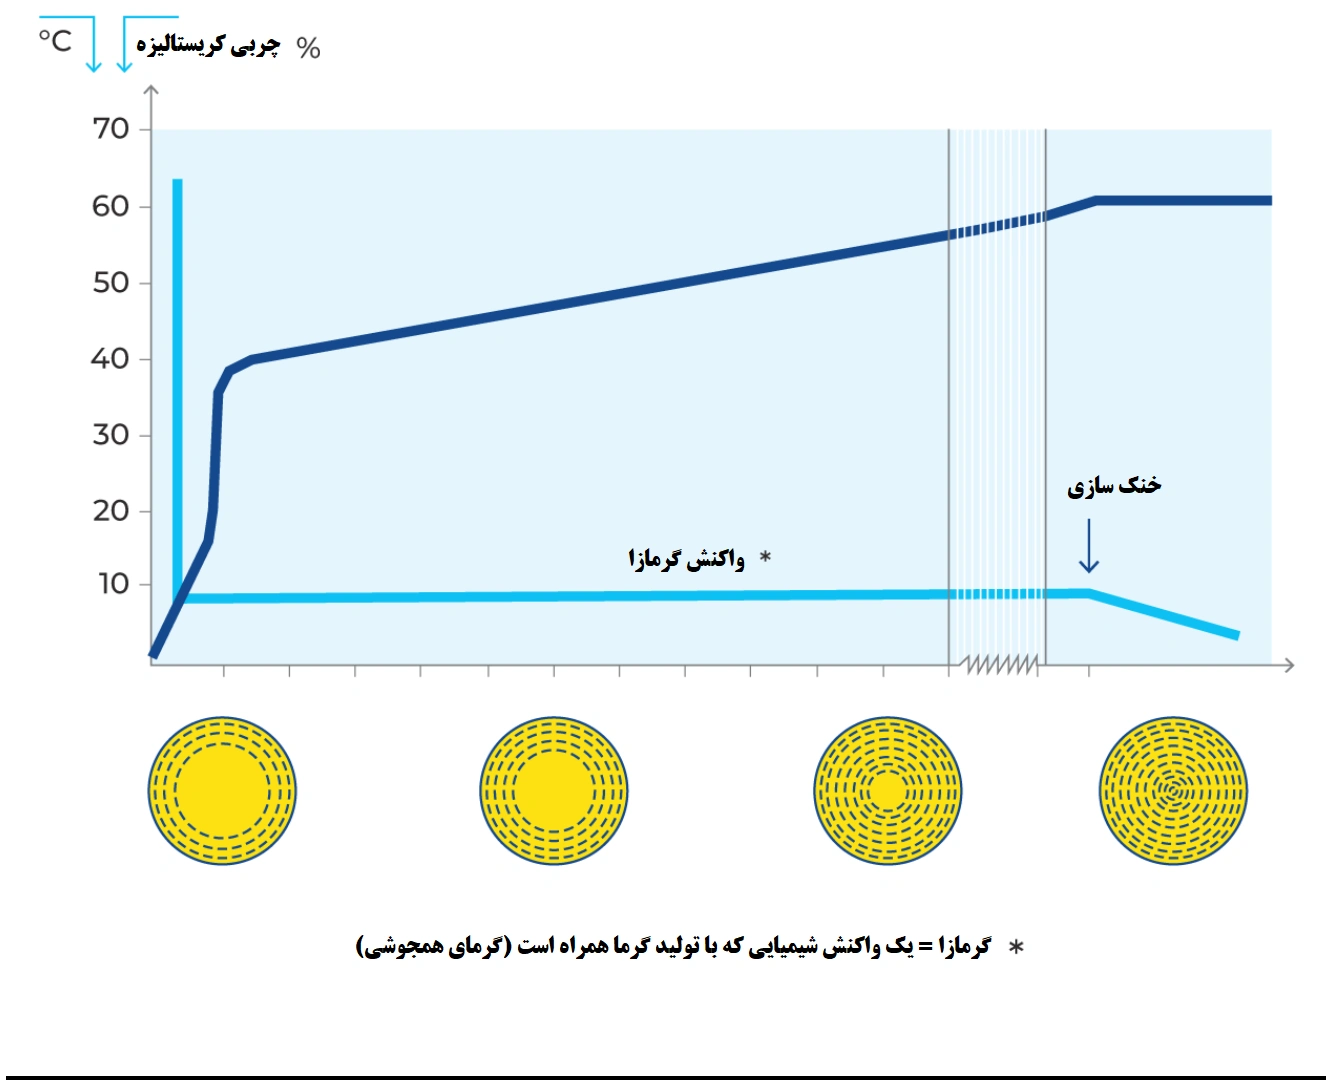
شکل ۲.۲۲- تبلور (کریستالیزاسیون) چربی شیر یک واکنش گرماده است، به این معنی که این واکنش شیمیایی با آزاد شدن گرما همراه است. منحنی تبلور بر اساس تحلیلهای انجامشده با روش NMR (تشدید مغناطیسی هستهای) به دست آمده است.
پروتئینهای شیر
پروتئینها بخش ضروری رژیم غذایی ما هستند. پروتئینهایی که مصرف میکنیم، در دستگاه گوارش و کبد به ترکیبات سادهتری تجزیه میشوند. سپس این ترکیبات به سلولهای بدن منتقل شده و در آنجا به عنوان مصالح ساختمانی برای ساختن پروتئینهای خود بدن مورد استفاده قرار میگیرند. بخش عمدهای از واکنشهای شیمیایی که در ارگانیسم (سازواره) رخ میدهند، توسط پروتئینهای فعال خاصی به نام آنزیمها کنترل میشوند.
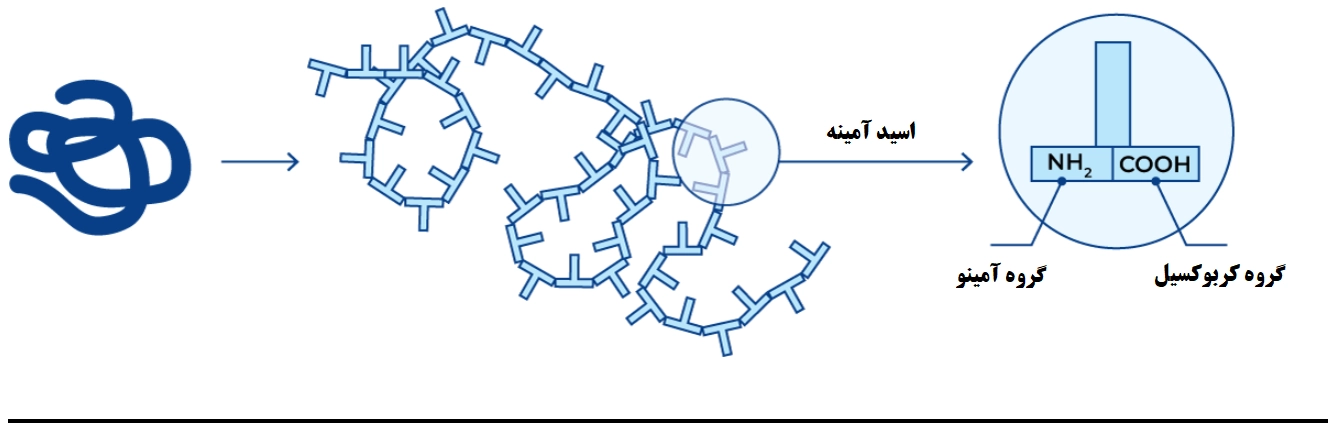
شکل ۲.۲۳ – مدل یک مولکول پروتئین، زنجیرهای از اسیدهای آمینه، و گروههای آمینو و کربوکسیل
پروتئینها مولکولهای عظیمی هستند که از واحدهای کوچکتری به نام اسیدهای آمینه ساخته شدهاند (شکل 2.23). یک مولکول پروتئین از یک یا چند زنجیره بههمپیوسته اسید آمینه تشکیل میشود که در آن، اسیدهای آمینه به ترتیب مشخصی کنار هم قرار گرفتهاند. یک مولکول پروتئین معمولاً حدود 100 تا 200 اسید آمینه متصل به هم دارد، هرچند هم تعدادهای کمتر و هم بسیار بیشتر نیز برای تشکیل یک مولکول پروتئین شناخته شدهاند.
اسیدهای آمینه
اسیدهای آمینهای که در شکل 2.24 نشان داده شدهاند، واحدهای سازنده پروتئین هستند و بهوسیله حضور همزمان یک گروه آمینی (–NH2) و یک گروه کربوکسیل (–COOH) در مولکول، از یکدیگر متمایز میشوند. پروتئینها از نوع خاصی از اسیدهای آمینه به نام اسیدهای آمینه آلفا (α-amino acids) تشکیل میشوند؛ یعنی اسیدهایی که هر دو گروه آمینی و کربوکسیلی به همان اتم کربن، یعنی کربن آلفا (α-carbon) ، متصل باشند. اسیدهای آمینه به گروهی از ترکیبات شیمیایی تعلق دارند که میتوانند در محلولهای قلیایی، یون هیدروژن آزاد کنند و در محلولهای اسیدی، یون هیدروژن جذب نمایند. چنین ترکیباتی را الکترولیتهای آمفوتری یا آمفولیتها مینامند. بنابراین، اسیدهای آمینه میتوانند در سه حالت ظاهر شوند:
1- دارای بار منفی در محلولهای قلیایی
2- خنثی با تعداد بارهای مثبت و منفی برابر
3 – دارای بار مثبت در محلولهای اسیدی
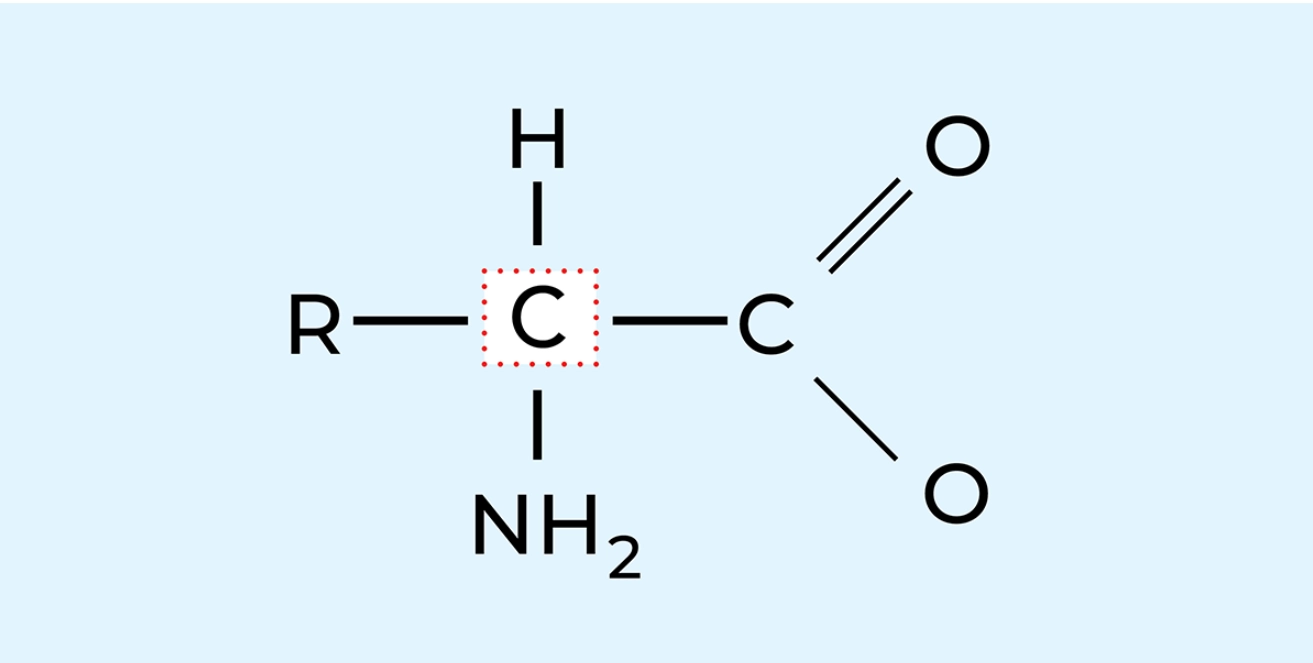
شکل ۲.۲۴ – ساختار عمومی یک اسید آمینه. حرف R در شکل نشاندهنده زنجیره (ماده) آلی متصل به اتم کربن مرکزی است.
پروتئینها از 20 اسید آمینه ساخته شدهاند. نکتهای مهم از دیدگاه تغذیه آن است که هشت اسید آمینه از این 20 اسید آمینه، و در مورد نوزادان نه اسید آمینه توسط بدن انسان قابل سنتز نیستند. از آنجا که این اسیدهای آمینه برای حفظ متابولیسم مناسب ضروریاند، باید از طریق غذا تأمین شوند. به اینها اسیدهای آمینه ضروری گفته میشود، و همگی در پروتئین شیر وجود دارند.
نوع و ترتیب اسیدهای آمینه در مولکول پروتئین، ماهیت آن پروتئین را تعیین میکند. هر تغییری در اسیدهای آمینه، چه از نظر نوع و چه از نظر جایگاه در زنجیره مولکولی، ممکن است به پروتئینی با خواص متفاوت منجر شود.
از آنجا که تعداد ترکیبهای ممکنِ 20 اسید آمینه در یک زنجیره شامل 100 تا 200 اسید آمینه بسیار زیاد است، تعداد پروتئینهایی که میتوانند خواص متفاوت داشته باشند نیز بسیار زیاد خواهد بود. شکل 2.24 مدل یک اسید آمینه را نشان میدهد. همانطور که پیشتر ذکر شد، اسیدهای آمینه هم دارای یک گروه آمینی کمی بازی–(NH2) و هم یک گروه کربوکسیلی کمی اسیدی (–COOH) هستند. این گروهها به یک زنجیره جانبی ، (R)، متصلاند.
اگر زنجیره جانبی قطبی باشد، ویژگیهای آبدوستِ گروههای بازی و اسیدی، همراه با زنجیره جانبی قطبی، معمولاً غالب میشوند و در نتیجه، کل اسید آمینه آب را جذب میکند و بهراحتی در آب حل میشود. به چنین اسید آمینهای آبدوست یا هیدروفیلیک گفته میشود.
از سوی دیگر، اگر زنجیره جانبی از نوع هیدروکربنی باشد و رادیکالهای آبدوست نداشته باشد، ویژگیهای زنجیره هیدروکربنی غالب میشوند. یک زنجیره هیدروکربنی بلند، آب را دفع میکند و اسید آمینه را کممحلولتر یا ناسازگارتر با آب میسازد. به چنین اسید آمینهای آبگریز یا هیدروفوبیک گفته میشود.
اگر در زنجیره هیدروکربنی، رادیکالهایی مانند گروه هیدروکسیل (–OH) یا گروه آمینی (–NH2) وجود داشته باشند، ویژگیهای آبگریز آن به سمت آبدوستی بیشتر تعدیل میشود. اگر اسیدهای آمینه آبگریز در بخشی از یک مولکول پروتئین غالب باشند، آن بخش دارای ویژگیهای آبگریز خواهد بود.
به همین ترتیب، تجمع اسیدهای آمینه آبدوست در بخش دیگری از مولکول، به آن بخش ویژگیهای آبدوست میدهد. بنابراین یک مولکول پروتئین ممکن است آبدوست، آبگریز، حدواسط، یا بهصورت موضعی آبدوست و آبگریز باشد.
برخی از پروتئینهای شیر، از نظر سازگاری با آب، تفاوتهای بسیار زیادی در درون مولکول خود نشان میدهند و برخی از خواص بسیار مهم این پروتئینها به چنین تفاوتهایی وابسته است.
گروههای هیدروکسیل موجود در زنجیره برخی از اسیدهای آمینه در کازئین میتوانند با اسید فسفریک استری شوند. چنین گروههایی به کازئین امکان میدهند که یونهای کلسیم یا فسفات کلسیم کلوئیدی هیدروکسیله را متصل کند و در نتیجه، پلهای محکمی میان مولکولها یا درون آنها تشکیل شود.
وضعیت الکتریکی پروتئینهای شیر
زنجیرههای جانبی برخی از اسیدهای آمینه در پروتئینهای شیر دارای بار الکتریکی هستند و این وضعیت به PH شیربستگی دارد. هنگامی که PH شیر با افزودن یک اسید یا باز تغییر میکند، توزیع بار در پروتئینها نیز تغییر مییابد. وضعیت الکتریکی پروتئینهای شیر و خواص حاصل از آن در شکلهای 2.25 تا 2.28 نشان داده شده است.
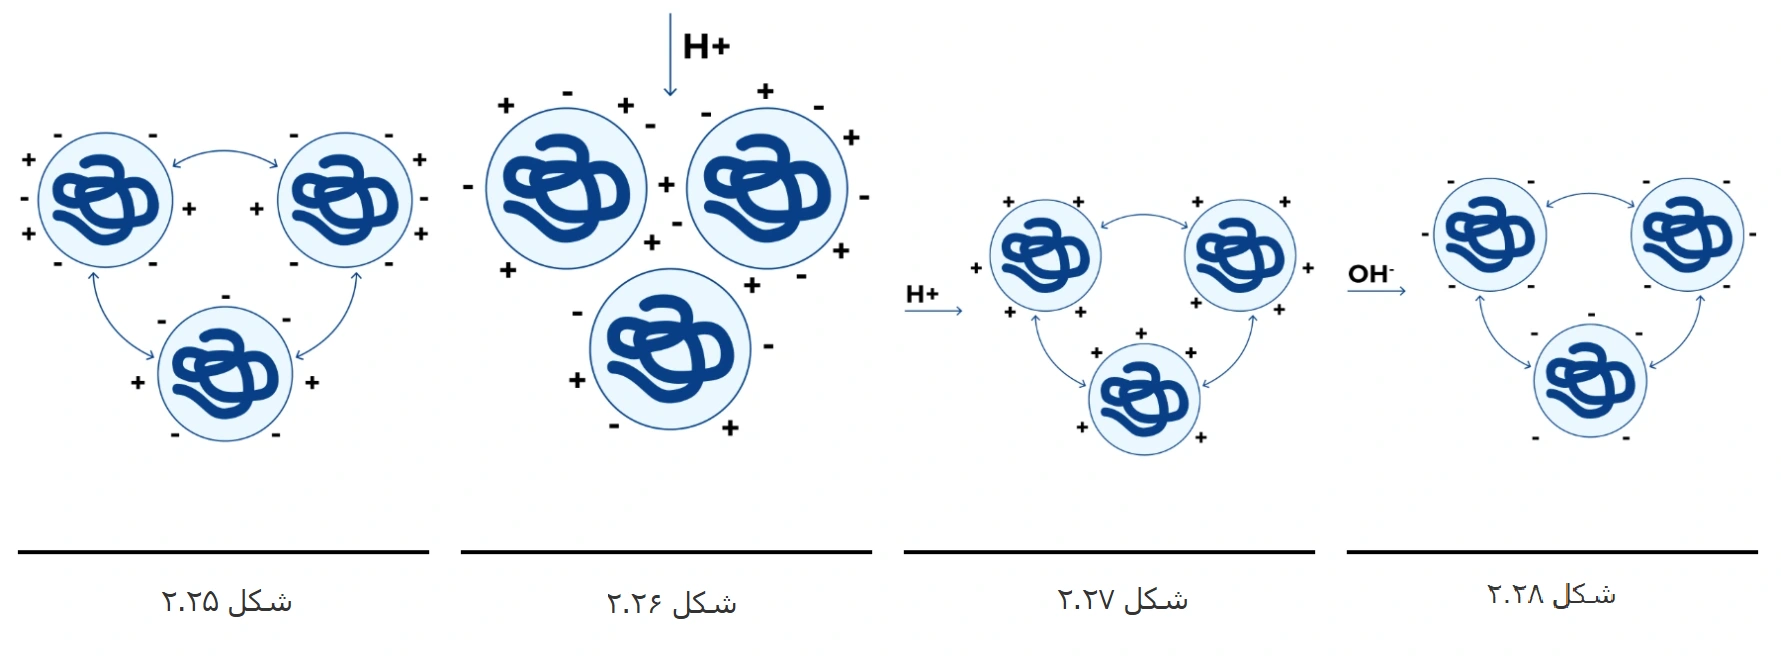
شکل ۲.۲۵ : یک مولکول پروتئین در PH= 6.6 دارای بار خالص منفی است.
شکل ۲.۲۶ : مولکولهای پروتئین در pH ≈ 4.6 ، یعنی نقطه ایزوالکتریک
شکل ۲.۲۷ : مولکول های پروتئین در PH ≈ 1
شکل ۲.۲۸ : مولکول های پروتئین در PH ≈ 14
در PH طبیعی شیر (حدود ۶.۶)، یک مولکول پروتئین دارای بار خالص منفی است (شکل 2.25). مولکولهای پروتئین از یکدیگر جدا میمانند زیرا بارهای الکتریکی مشابه، یکدیگر را دفع میکنند.
اگر یونهای هیدروژن اضافه شوند (شکل 2.26)، توسط مولکولهای پروتئین جذب میگردند. در مقدار PH ای که بار مثبت پروتئین با بار منفی آن برابر است(یعنی جایی که تعداد گروههای NH3 و COO– در زنجیرههای جانبی برابر باشد)بار کل خالص پروتئین صفر میشود. در این حالت، مولکولهای پروتئین دیگر یکدیگر را دفع نمیکنند، بلکه بارهای مثبتِ یک مولکول با بارهای منفی مولکولهای مجاور پیوند برقرار کرده و خوشههای پروتئینی بزرگی تشکیل میشوند. در این وضعیت، پروتئین از محلول رسوب میکند. pH ای که در آن این اتفاق میافتد، نقطه ایزوالکتریک پروتئین نامیده میشود.
در حضور مقادیر مازاد یونهای هیدروژن، مولکولها مطابق شکل 2.27 دارای بار خالص مثبت میشوند. در این حالت، آنها بار دیگر یکدیگر را دفع کرده و بنابراین در محلول باقی میمانند. از سوی دیگر، اگر یک محلول قلیایی قوی (NaOH) اضافه شود، تمام پروتئینها بار منفی پیدا کرده و حل میشوند.
طبقهبندی پروتئینهای شیر
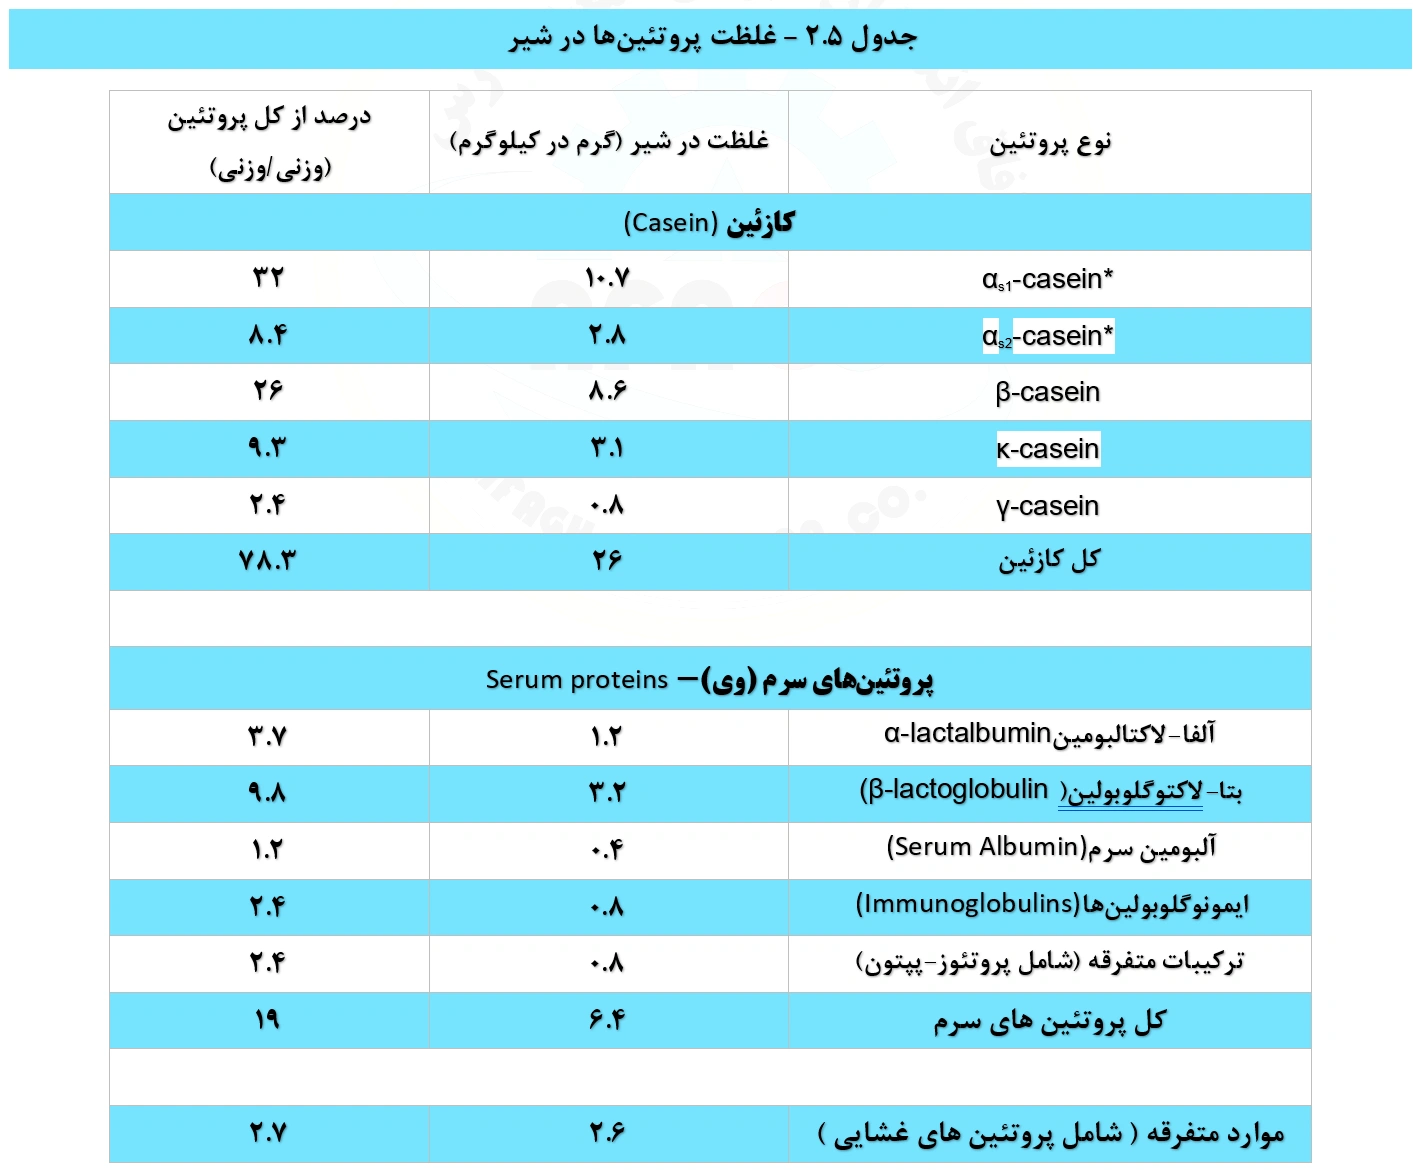
شیر حاوی صدها نوع پروتئین است که اکثر آنها در مقادیر بسیار ناچیز وجود دارند. پروتئینها را میتوان به روشهای مختلف بر اساس خواص شیمیایی یا فیزیکی و عملکردهای بیولوژیکیشان طبقهبندی کرد. روش قدیمی گروهبندی پروتئینهای شیر به کازئین، آلبومین و گلوبولین، جای خود را به سیستم طبقهبندی مناسبتری داده است. جدول 2.5 فهرستی خلاصه از پروتئینهای شیر را بر اساس سیستم مدرن نشان میدهد. گروههای پروتئینی فرعی جهت سادگی حذف شدهاند.
پروتئین آبپنیر (Whey protein) واژهای است که اغلب به عنوان مترادف برای پروتئینهای سرم شیر به کار میرود، اما این اصطلاح باید برای پروتئینهای موجود در آبپنیر حاصل از « فرآیند پنیرسازی» اختصاص یابد. پروتئین آبپنیر علاوه بر پروتئینهای سرم شیر، حاوی قطعاتی از مولکولهای کازئین نیز هست. همچنین برخی از پروتئینهای سرم شیر با غلظت کمتری نسبت به شیر اولیه در آبپنیر حضور دارند؛ این امر به دلیل دناتوراسیون (واسرشتن) حرارتی طی فرآیند پاستوریزاسیون شیر پیش از پنیرسازی است.
کازئین (Casein)
کازئین مخلوطی از چندین جزء است (جدول 2.5) و طبقه غالب پروتئینهای شیر را تشکیل میدهد که حدود چهارپنجم پروتئینهای شیر را شامل میشود. چهار زیرگروه اصلی برای کازئین وجود دارد: as1-casein, as2-casein, κ-casein و β-casein که همگی ناهمگن بوده و از چندین واریانت (سویه) ژنتیکی تشکیل شدهاند. واریانتهای ژنتیکی یک پروتئین تنها در چند اسید آمینه با یکدیگر تفاوت دارند. کازئینها با یکدیگر تجمع یافته و خوشههای بزرگی به نام میسل (Micelle) را تشکیل میدهند. میسلها از صدها و هزاران مولکول منفرد پروتئین کازئین ساخته شدهاند و اندازه آنها بین ۵۰ تا ۵۰۰ نانومتر متغیر است. از آنجا که میسلها دارای ابعاد کلوئیدی هستند، قادر به پراکنده کردن نور میباشند؛ به همین دلیل، رنگ سفید شیر پسچرخ (بدون چربی) تا حد زیادی ناشی از پراکندگی نور توسط میسلهای کازئین است.
میسلهای کازئین
میسلهای کازئین پیامدهای مهمی برای ویژگیهای شیر دارند. آنها تا حد زیادی پایداری فیزیکی فرآوردههای شیری را در طی حرارتدهی و نگهداری تعیین میکنند، برای پنیرسازی ضروریاند و خواص رئولوژیکی فرآوردههای تخمیری و تغلیظ شده لبنی را مشخص میسازند.
میسلهای کازئین تودههایی نسبتاً متراکم هستند که نواحی کوچکی از فسفات کلسیم در آنها وجود دارد؛ این نواحی میسلها را به هم متصل میکنند و به میسلها ساختاری باز و متخلخل میدهند. حذف فسفات کلسیم کلوئیدی (CCP)، برای مثال بر اثر اسیدی شدن یا افزودن EDTA یا سیتراتها ، به ازهمپاشیدن میسلها منجر میشود. این فروپاشی همچنین هنگامی رخ میدهد که pH از 9 بالاتر رود. ساختار درونی یک میسل کازئین مدتهاست موضوع بحث بوده و هنوز بهطور کامل روشن نشده است. سه مدل اصلی برای آن پیشنهاد شده است: مدل نانوکلاستر، مدل اتصال دوگانه و مدل زیرمیسل (sub-micelle). با این حال، درباره چند ویژگی آن توافق وجود دارد. میسلها ذراتی تقریباً کرویشکل با قطر متوسط حدود 150 نانومتر هستند، اما دامنه اندازه آنها بسیار گسترده است α و β-کازئینها عمدتاً در مرکز میسل متمرکزند، در حالی که k-کازئین بیشتر در سطح میسل قرار دارد. در اطراف میسل، یک لایه پُرمو یا hairy layer وجود دارد که عمدتاً از انتهای C-ترمینال κ-کازئین تشکیل شده و 5 تا 10 نانومتر از سطح میسل بیرون میزند. زنجیره بیرونزده κ -کازئین آبدوست و دارای بار منفی است و سهم عمدهای در پایداری فضایی/ استریک میسلها دارد. اگر این لایه پُرمو حذف شود، برای مثال در اثر افزودن اتانول یا هیدرولیز القاشده توسط مایه پنیر، پایداری کلوئیدی میسل تغییر میکند و میسلها به هم تجمع یافته یا رسوب میکنند. همچنین بهطور کلی پذیرفته شده است که درون میسلها نانوکلاسترهای فسفات کلسیم وجود دارند که قطر آنها حدود 3 نانومتر است و بخش عمده فسفات و کلسیم میسل را در خود جای میدهند. نیروهای نگهدارنده میسل عبارتاند از برهمکنشهای آبگریز میان گروههای پروتئینی، پیوندهای عرضی میان زنجیرههای پپتیدی توسط نانوکلاسترها، و پیوندهای یونی.
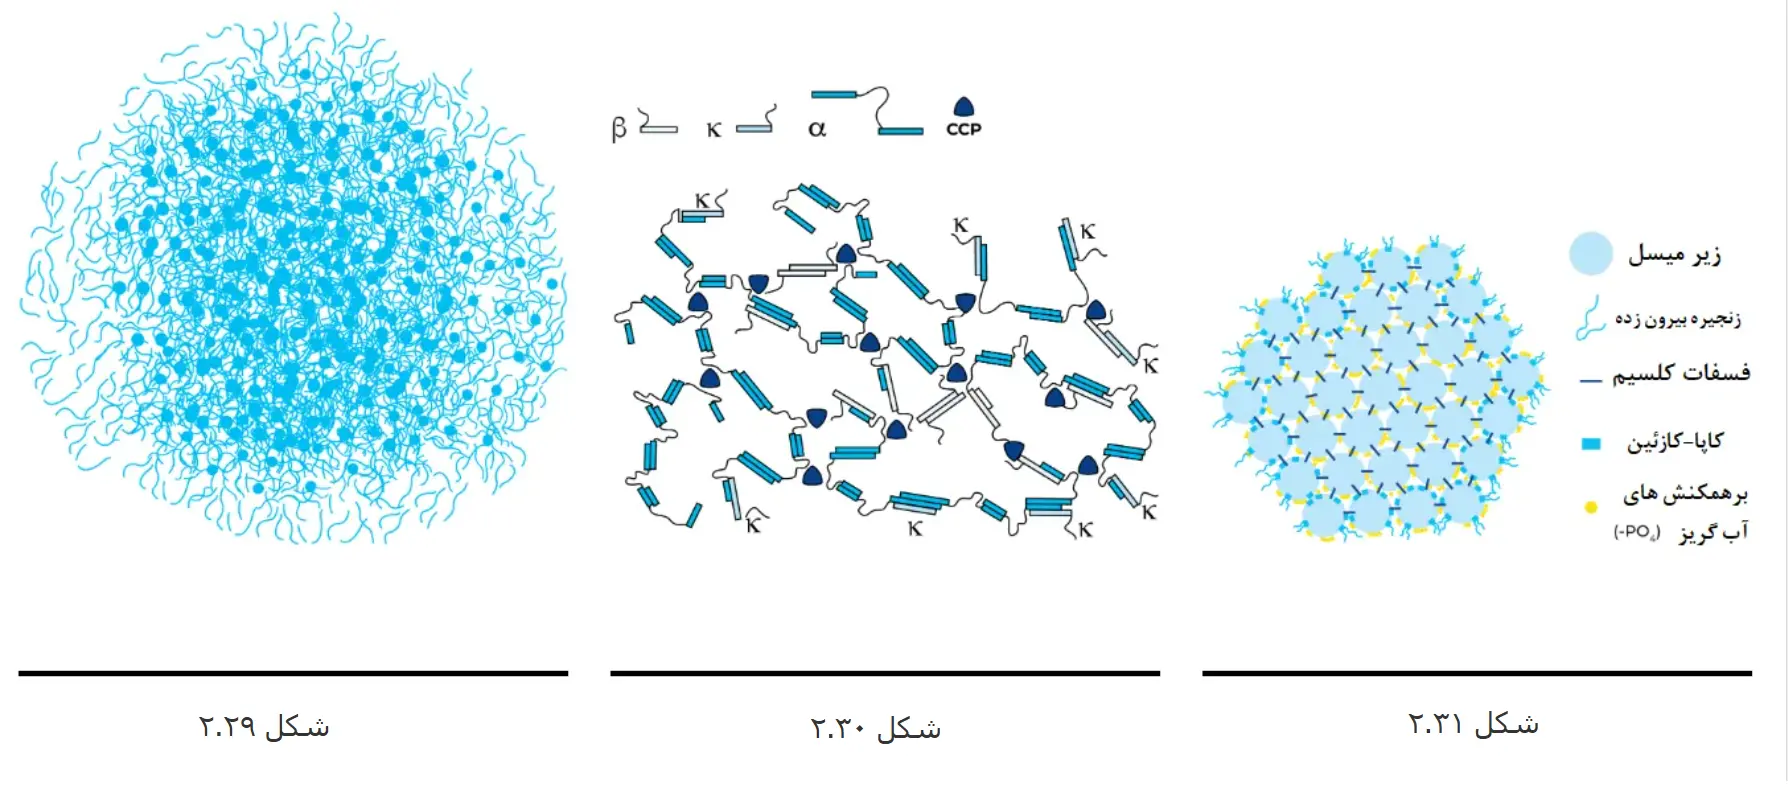
شکل ۲.۳۱ – مدل زیرمیسلی میسل کازئین.
شکل ۲.۳۰ – مدل اتصال دوگانه
شکل ۲.۲۹ – مدل نانوخوشهای میسلهای کازئین
«بازترسیم شده از خلاصهای از مدلهای ارائهشده توسط اسلاتری و ایوارد (۱۹۷۳)، اشمیت (۱۹۸۲) و والسترا (۱۹۹۰) بهنقل از رولما (۱۹۹۲). رولما، اچ. اس. (۱۹۹۲) انجمن کازئین و تشکیل میسل، ص ۶۳–۱۱۱. انتشارات علمی الزویر، لندن.»
ساختار میسل کازئین ثابت نیست، بلکه پویا است. یک میسل کازئین و محیط اطراف آن به طور مداوم در حال تبادل اجزا با یکدیگر هستند. این ساختار به تغییرات محیط میسلی، دما، pH و فشار پاسخ میدهد.
اگر انتهای زنجیره آبدوست و بیرونزدهی -k کازئین در سطح میسلها شکافته شود، برای مثال بهوسیله مایه پنیر (رنت) ، میسلها حلالیت خود را از دست میدهند و شروع به تجمع کرده و لخته کازئینی تشکیل میدهند. در یک میسل سالم، مازاد بارهای منفی وجود دارد، بنابراین میسلها یکدیگر را دفع میکنند. مولکولهای آبی که بهوسیله جایگاههای آبدوست -kکازئین نگه داشته میشوند، بخش مهمی از این تعادل را تشکیل میدهند. اگر این جایگاههای آبدوست حذف شوند، آب شروع به ترک ساختار میکند. در این حالت، نیروهای جاذبه فرصت اثرگذاری پیدا میکنند. پیوندهای جدیدی تشکیل میشود: یکی از نوع نمکی که در آن کلسیم نقش فعال دارد، و دیگری از نوع آبگریز. این پیوندها سپس خروج بیشتر آب را تشدید میکنند و در نهایت ساختار به یک دلمه متراکم فرو میریزد. میسلها از دمای پایین نیز بهطور نامطلوب تأثیر میپذیرند. در این دما، زنجیرههای – βکازئین شروع به جدا شدن میکنند و فسفات کلسیم کلوئیدی (CCP) از ساختار میسل، که در آن به صورت کلوئیدی وجود داشت، خارج شده و وارد محلول میشود. توضیح این پدیده آن است که – βکازئین آبگریزترین کازئین است و با کاهش دما، برهمکنشهای آبگریز تضعیف میشوند.
به نظر میرسد میسلها تا حدی از هم متلاشی میشوند و حجم ظاهری میسلهای کازئین افزایش مییابد. از دست رفتن CCP باعث کاهش نیروی جاذبه بین مولکولهای منفرد کازئین میشود. این تغییرات، شیر را برای پنیرسازی کمتر مناسب میکنند، زیرا موجب طولانیتر شدن زمان انعقاد با مایه پنیر و نرمتر شدن دلمه میشوند.
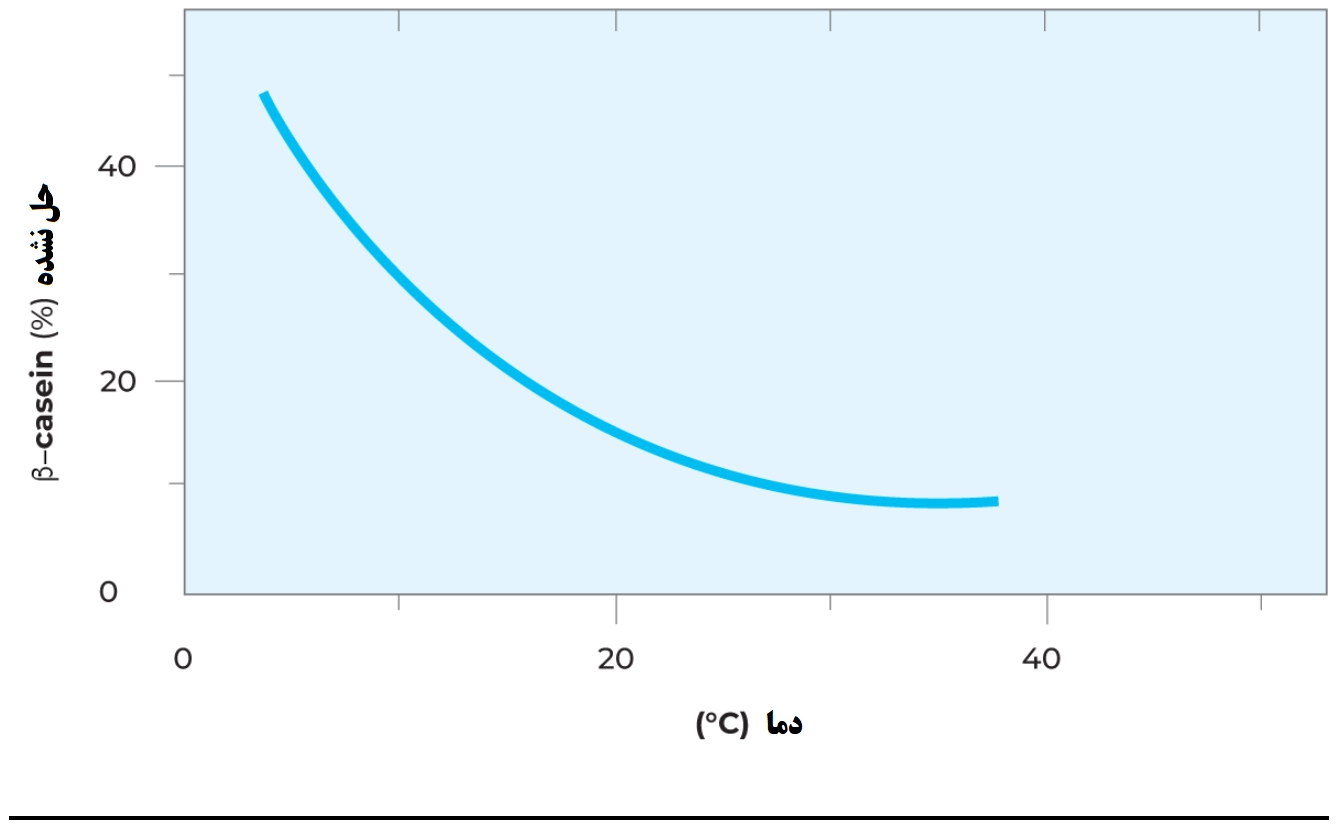
شکل ۲.۳۲- درصد بتا-کازئین ( 𝛽-کازئین) غیرمتصل به میسلها پس از نگهداری شیر به مدت حدود ۲۴ ساعت در دماهای مختلف
منبع: بازترسیمشده از والسترا، ووترز و گورتس ۲۰۰۶، علم و فناوری لبنیات (Dairy Science and Technology)
| دو روش برای ایجاد فلوکوله شدن و انعقاد ذرات کازئینات وجود دارد:
– رسوبدهی با اسید – رسوبدهی با آنزیمها نکته: اگر مقدار زیادی اسید به یک لخته یا انعقادِ مشخص اضافه شود، کازئین دوباره حل میشود و با اسید یک نمک تشکیل میدهد. اگر از اسید هیدروکلریک استفاده شود، محلول حاوی هیدروکلرید کازئین خواهد بود که تا حدی به یونها تفکیک شده است. |
پس از خروج بتا-کازئین از میسل، این پروتئین توسط پروتئازهای مختلف موجود در شیر نیز آسانتر هیدرولیز میشود. هیدرولیز بتا-کازئین به گاما-کازئین و پروتئوز-پپتونها به معنای کاهش بازدهی در تولید پنیر است، زیرا بخشهای پروتئوز-پپتون در آبپنیر (whey) هدر میروند. تجزیه بتا-کازئین همچنین میتواند منجر به تشکیل پپتیدهای تلخ شود که مشکلات طعم نامطبوع (off-flavour) را در محصولات لبنی ایجاد میکند. این تغییرات کند هستند و تکمیل آنها در دمای ۵ درجه سلسیوس حدود ۲۴ ساعت زمان میبرد. نمودار شکل ۲.۳۲ مقدار تقریبی بتا-کازئین (به درصد) را نشان میدهد که طی ۲۴ ساعت نگهداری، از میسل خارج میشود. با حرارتدهی بعدی شیر خام یا پاستوریزه خنکشده تا دمای ۶۲ تا ۶۵ درجه سلسیوس به مدت حدود ۲۰ ثانیه، بتا-کازئین و کلسیم فسفات تا حدی به میسل بازمیگردند و بدین ترتیب، ویژگیهای اولیه شیر حداقل تا حدودی بازیابی میشود.
با افزایش دما، میسلها تا حدودی منقبض شده و مقدار کلسیم فسفات کلوئیدی (CCP) افزایش مییابد. هنگامی که پروتئینهای سرمی (پروتئینهای آبپنیر) در حین حرارتدهی حضور دارند، در حین دناتوراسیون حرارتی خود با میسلهای کازئین متصل (همراه) شده و تا حد زیادی به سطح میسل پیوند میخورند. یک نمونه از این مورد، اتصال بتا-لاکتوگلوبولین با کاپا-کازئین در طول فرآیند حرارتی است. بیشتر این اتصالات را نمیتوان با سرد کردن مجدد برگشت داد (برگشتناپذیر هستند).
رسوبدهی کازئین
یکی از ویژگیهای مشخصه کازئین، توانایی آن در رسوب کردن است. به دلیل ماهیت پیچیده مولکولهای کازئین و همچنین میسلهای تشکیلشده از آنها، عوامل مختلف بسیاری میتوانند باعث رسوبدهی شوند. باید توجه داشت که تفاوت زیادی بین شرایط بهینه رسوبدهی برای کازئین در حالت میسلی و غیرمیسلی (مانند سدیم کازئینات) وجود دارد. توصیفات زیر عمدتاً به رسوبدهی کازئین میسلی اشاره دارد.
رسوبدهی با اسید
در صورت افزودن اسید به شیر یا اجازه رشد به باکتریهای مولد اسید در آن، میزان pH کاهش مییابد. این امر محیطِ میسلهای کازئین را به دو روش تغییر میدهد. روند این وقایع در شکل ۲.۳۳ به تصویر کشیده شده است. نخست، کلسیم هیدروکسی فسفات کلوئیدی موجود در میسلِ کازئین، حل شده و کلسیم یونیزه تشکیل میدهد؛ این یونها به درون ساختار میسل نفوذ کرده و پیوندهای داخلی کلسیمیِ قدرتمندی ایجاد میکنند. دوم اینکه، pH محلول به نقطه ایزوالکتریک گونههای مختلف کازئین نزدیک میشود.
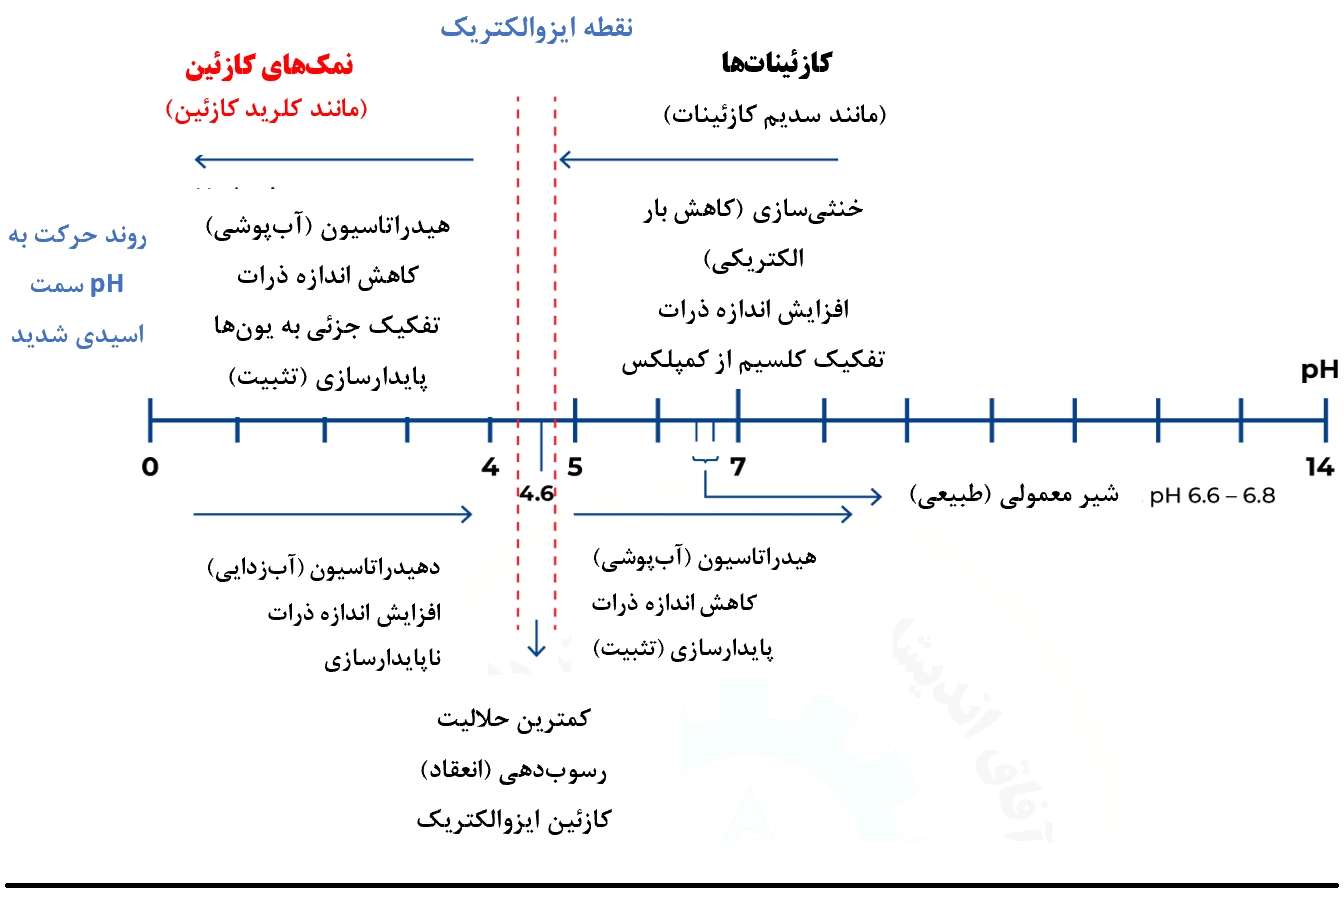
شکل ۲.۳۳ – سه مرحله سادهشده از تأثیر اسید و باز (قلیا) بر کازئین
هر دو روش اثر، تغییری را درون میسلها آغاز میکنند که با رشد میسلها از طریق تجمع شروع میشود و در نهایت به یک لخته یا انعقاد کمابیش متراکم ختم میگردد. بسته به مقدار نهایی PH، این لخته یا انعقاد یا حاوی کازئین در حالت نمکی خواهد بود، یا کازئین در حالت ایزوالکتریک، یا هر دو.
نقاط ایزوالکتریک اجزای کازئین به یونهای دیگرِ موجود در محلول بستگی دارد. مقادیر نظری که در شرایط معین معتبرند، در محدوده PH 5.1 تا 5.3 قرار دارند. در محلولهای نمکی، مشابه شرایط شیر، دامنه مناسب برای رسوبدهی بهینه PH 4.5تا 4.9 است. مقدار عملی برای رسوبدهی کازئین از شیر، PH = 4.6 است.
اگر مقدار زیادی سدیم هیدروکسید به کازئین ایزوالکتریکِ رسوبکرده افزوده شود، کازئینِ دوباره حلشده به سدیم کازئینات تبدیل میشود که تا حدی به یونها تفکیک شده است. PH محصولات شیرِ تخمیری معمولاً در محدوده 3.9 تا 4.5 قرار دارد که در سمت اسیدیِ نقاط ایزوالکتریک است. در تولید کازئین از شیر بدون چربی با افزودن اسید سولفوریک یا اسید هیدروکلریک، PH انتخابی اغلب 4.6 است.
رسوبدهی با آنزیمها
زنجیره آمینواسیدیِ تشکیلدهنده مولکول κ-کازئین از ۱۶۹ آمینواسید تشکیل شده است. از دیدگاه آنزیمی، پیوند بین آمینواسیدهای ۱۰۵ (فنیلآلانین) و ۱۰۶ (متیونین) بهراحتی در دسترس بسیاری از آنزیمهای پروتئولیتیک قرار دارد.
برخی آنزیمهای پروتئولیتیک این پیوند را مورد حمله قرار میدهند و زنجیره را میشکنند. انتهای آمینیِ محلول، شامل آمینواسیدهای ۱۰۶ تا ۱۶۹ است که در آنها آمینواسیدهای قطبی و نیز بخش کربوهیدراتی غالباند و همین موضوع به این توالی ویژگیهای آبدوست میدهد. این بخش از مولکول κ-کازئین را گلیکوماکروپپتید (GMP) مینامند و در جریان پنیرسازی وارد آبپنیر میشود.
بخش باقیمانده κ-کازئین، شامل آمینواسیدهای ۱ تا ۱۰۵، نامحلول است و همراه با α- و β-کازئین در لخته باقی میماند. این بخش را پاراکازئین مینامند.
تشکیل لخته به علت حذف ناگهانی پپتیدهای بزرگِ آبدوست و در نتیجه برهمخوردن تعادل نیروهای بینمولکولی رخ میدهد. پیوندهای میان نواحی آبگریز شروع به شکلگیری میکنند و این فرایند بهوسیله پیوندهای کلسیمی که با خارج شدن مولکولهای آب از ساختار میسلها ایجاد میشوند، تقویت میگردد. به این فرایند معمولاً مرحله انعقاد و سینرزیس گفته میشود.
شکستن پیوند ۱۰۵–۱۰۶ در مولکول κ-کازئین اغلب مرحله اولیه عمل مایه پنیر نامیده میشود، در حالی که مرحله انعقاد و سینرزیس مرحله ثانویه محسوب میشود. همچنین یک مرحله سوم برای عمل مایه پنیر وجود دارد که در آن مایه پنیر بهطور کلیتری به اجزای کازئین حمله میکند. این مرحله هنگام رسیدن پنیر رخ میدهد.
مدت زمان هر سه مرحله عمدتاً به pH و دما بستگی دارد. علاوه بر این، مرحله ثانویه بهشدت تحت تأثیر غلظت یون کلسیم و نیز وضعیت میسلها از نظر عدم وجود یا وجود پروتئینهای دناتورهشده سرم شیر بر سطح میسلها قرار دارد.
پروتئینهای آبپنیر
پروتئین آبپنیر نامی است که بهطور رایج برای پروتئینهای سرم شیر به کار میرود. اگر کازئین از شیر بدون چربی با روش رسوبدهی، مانند افزودن اسید معدنی، جدا شود، گروهی از پروتئینها در محلول باقی میمانند که به آنها پروتئینهای سرم شیر گفته میشود. اگر این پروتئینها بر اثر حرارت دناتوره نشوند، در نقاط ایزوالکتریک خود رسوب نمیکنند.
هنگامی که شیر حرارت داده میشود، بخشی از پروتئینهای آبپنیر دناتوره شده و با کازئین کمپلکس تشکیل میدهند؛ در نتیجه، توانایی کازئین برای حملهپذیری توسط مایه پنیر و نیز اتصال به کلسیم کاهش مییابد. لختهای که از شیری با دمای بالا تهیه شود، مانند لخته معمولی پنیر، آبپنیر آزاد نمیکند؛ زیرا تعداد پلهای کازئینی درون و بین مولکولهای کازئین کمتر است.
پروتئینهای آبپنیر بهطور کلی، و بهویژه آلفا-لاکتآلبومین، ارزش تغذیهای بسیار بالایی دارند. ترکیب آمینواسیدی آنها بهطور قابل توجهی به ترکیبی نزدیک است که بهعنوان بهینه زیستی در نظر گرفته میشود. مشتقات پروتئین آبپنیر بهطور گسترده در صنایع غذایی استفاده میشوند.
| پروتئینهای آبپنیر (سرم) عبارتند از:
α-لاکتآلبومین (آلفا-لاکتآلبومین) β-لاکتوگلوبولین (بتا-لاکتوگلوبولین) سرم آلبومین (آلبومین سرم خون) ایمونوگلوبولین (ایمنوگلوبولینها) |
آلفا-لاکتآلبومین
این پروتئین را میتوان پروتئین شاخص آبپنیر دانست. α -لاکتآلبومین در شیر تمامی پستانداران وجود دارد و نقش مهمی در سنتز لاکتوز در پستان (پستان دام) ایفا میکند.
بتا-لاکتوگلوبولین
این پروتئین فقط در سمداران یافت میشود و جزء اصلی پروتئینهای آبپنیر در شیر گاو است. اگر شیر تا بیش از ۶۰ درجه سلسیوس حرارت داده شود، دناتوراسیون آغاز میشود و در این فرایند، واکنشپذیری اسید آمینه گوگرددار در بتا-لاکتوگلوبولین نقش مهمی دارد. در این حالت، پیوندهای گوگردی شروع به تشکیل شدن میکنند؛ هم بین مولکولهای بتا-لاکتوگلوبولین، هم بین یک مولکول بتا-لاکتوگلوبولین و یک مولکول کاپا-کازئین، و هم بین آلفا-لاکتوگلوبولین و آلفا-لاکتآلبومین. در دماهای بالا، ترکیبات گوگردی مانند هیدروژن سولفید بهتدریج آزاد میشوند. این ترکیبات گوگردی مسئول طعم پخته در شیر حرارتدیده هستند.
ایمونوگلوبولینها و پروتئینهای فرعیِ مرتبط
این گروه پروتئینی بسیار ناهمگن است و تعداد کمی از اعضای آن بهطور دقیق مطالعه شدهاند. ایمونوگلوبولینها آنتیبادیهایی هستند که در پاسخ به تحریک توسط آنتیژنهای خاص سنتز میشوند. آنها بهطور اختصاصی در خون حضور دارند. مقدار آنها در شیر گاو کم است، اما برخی از آنها در آغوز و شیر انسان در سطوح بالاتری وجود دارند. این پروتئینها همچنین میتوانند علیه «ذراتی» مانند باکتریها، ویروسها و حتی گویچههای چربی عمل کنند و آنها را فلوکوله کنند؛ این واکنش آگلوتیناسیون نام دارد. به این ترتیب، باکتریها نیز میتوانند روی گویچههای چربی فلوکوله شوند و در لایه خامه تجمع یابند. وقتی میکروارگانیسمها فلوکوله میشوند، رشد و فعالیت آنها میتواند بهطور چشمگیری مهار شود. واکنش آگلوتیناسیون نسبت به یک آنتیژن مشخص، اختصاصی است. با این حال، برخی از آگلوتیناتها غیر اختصاصیاند، بهویژه در مورد پدیدهای به نام کریوپرسپیتاسیون–آگلوتیناسیون که در شیر سرد و در دماهای پایینتر از ۳۷ درجه سلسیوس رخ میدهد. پروتئینهای درگیر در این پدیده کریوگلوبولینها نامیده میشوند. آگلوتینینها بر اثر حرارت غیرفعال میشوند و توانایی آنها برای فلوکوله کردن ذرات از بین میرود. به همین دلیل، آگلوتیناسیون در شیر پاستوریزه رخ نمیدهد.
در آینده، احتمالاً بسیاری از مواد مهم بهصورت صنعتی از سرم شیر یا آبپنیر جداسازی خواهند شد. لاکتوفرین و لاکتوپراکسیداز از موادی هستند که احتمال کاربرد در صنایع دارویی و غذایی دارند و اکنون به روش صنعتی از آبپنیر استخراج میشوند. لاکتوفرین همچنین مهارکننده برخی باکتریها از جمله B. stearothermophilus و B. subtilis است. این مهار بهدلیل حذف آهن از سرم آنها رخ میدهد.
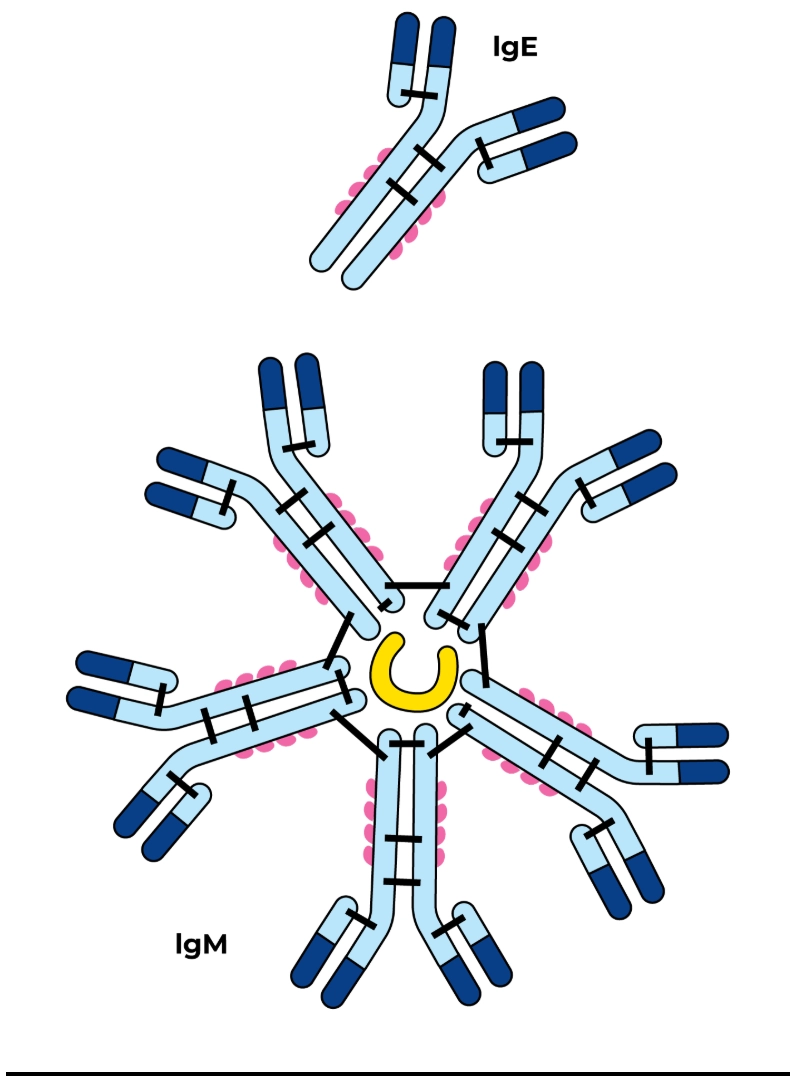
شکل ۲.۳۴ – شکل شماتیک دو ایمونوگلوبولین
منبع: P.F. Fox و P.L.H. McSweeney، شیمی و بیوشیمی لبنیات، ۱۹۹۸
پروتئینهای غشایی
پروتئینهای غشایی گروهی از پروتئینها هستند که یک لایه محافظ در اطراف گویچههای چربی تشکیل میدهند تا امولسیون را پایدار کنند، همانگونه که در شکل ۲.۳۵ نشان داده شده است. قوام آنها از نرم و ژلهمانند در برخی از پروتئینهای غشایی، تا نسبتاً سفت و محکم در برخی دیگر متغیر است. بعضی از این پروتئینها دارای بقایای لیپیدی هستند و لیپوپروتئین نامیده میشوند. لیپیدها و آمینواسیدهای آبگریزِ این پروتئینها باعث میشوند که بخشهای آبگریز مولکول به سمت سطح چربی و بخشهای کمتر آبگریز به سمت آب جهتگیری کنند.
پروتئینهای غشاییِ ضعیفاً آبگریز نیز به همین شیوه به این لایههای پروتئینی حمله میکنند و از سطح چربی به سمت آب، یک گرادیان آبگریزی ایجاد میشود. چنین گرادیانی در این غشا، آن را به محل مناسبی برای جذب مولکولهایی با درجات مختلف آبگریزی تبدیل میکند. بهویژه فسفولیپیدها و آنزیمهای لیپولیتیک در درون ساختار غشا جذب میشوند. تا زمانی که این ساختار دستنخورده باقی بماند، بین آنزیمها و سوبسترای آنها واکنشی رخ نمیدهد؛ اما بهمحض تخریب ساختار، آنزیمها میتوانند سوبسترای خود را بیابند و واکنشها را آغاز کنند.
نمونهای از این واکنش آنزیمی، آزاد شدن لیپولیتیکی اسیدهای چرب است؛ زمانی که شیر بهصورت سرد و با پمپ معیوب پمپ شود، یا پس از هموژنیزه کردن شیر سرد، بدون آنکه بلافاصله پس از آن پاستوریزه شود. اسیدهای چرب و برخی محصولات دیگر این واکنش آنزیمی، به محصول طعم تند و ماندهمانند میدهند.
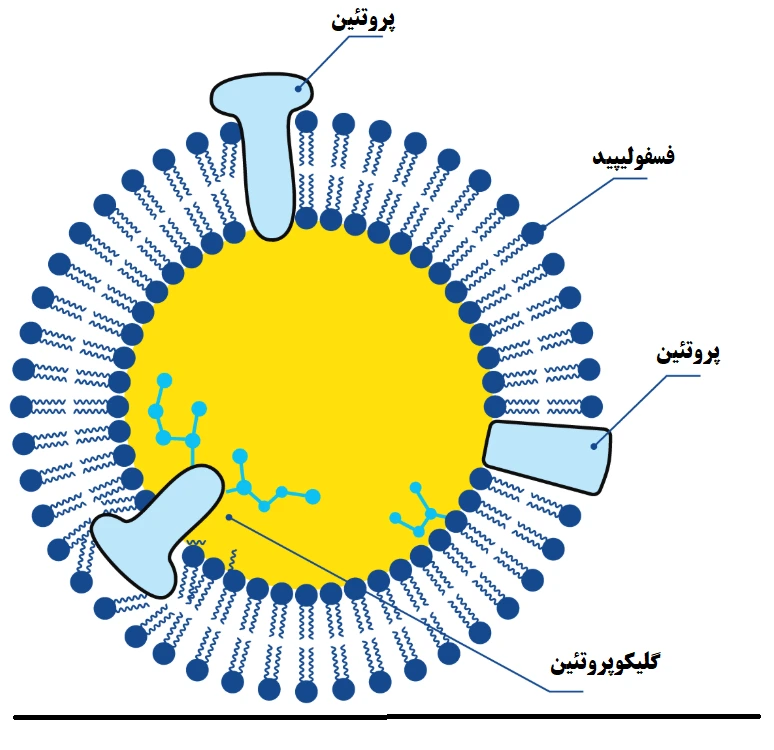
شکل ۲.۳۵ – پروتئینهای غشایی سطح گویچه چربی را میپوشانند.
1. فسفولیپید 2. پروتئین 3. گلیکوپروتئین
پروتئینهای دناتورهشده
تا زمانی که پروتئینها در محیطی با دما و PH در محدوده تحمل خود قرار داشته باشند، عملکردهای زیستیشان را حفظ میکنند. اما اگر تا دمایی بیش از یک حد حداکثریِ مشخص حرارت ببینند، ساختار آنها تغییر میکند؛ در این حالت گفته میشود که آنها دناتوره شدهاند (شکل ۲.۳۶). همین اتفاق در صورتی که پروتئینها در معرض اسیدها یا بازها، تابش (پرتودهی) یا فشار بالا قرار گیرند نیز رخ میدهد. در این شرایط، پروتئینها دناتوره شده و حلالیت اولیه خود را از دست میدهند.
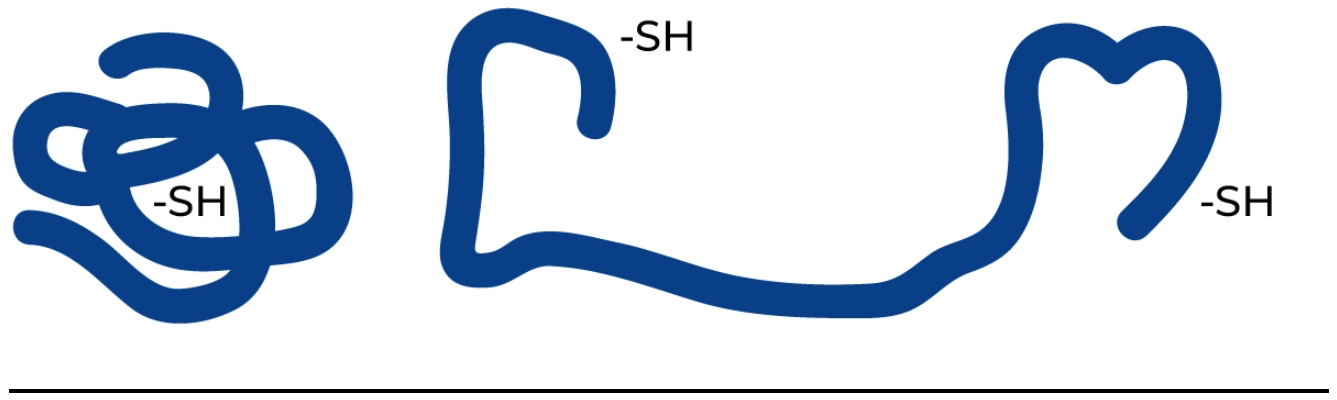
شکل 2.36- بخشی از یک پروتئین آبپنیر در حالت طبیعی (چپ) و دناتورهشده
وقتی پروتئینها دناتوره میشوند، فعالیت زیستی آنها متوقف میشود. آنزیمها که گروهی از پروتئینها با نقش کاتالیز کردن واکنشها هستند، با دناتورهشدن این توانایی را از دست میدهند. دلیل این امر آن است که پیوندهای خاصی در مولکول شکسته میشود و ساختار پروتئین تغییر میکند. پس از یک دناتوراسیون ملایم (ضعیف)، پروتئینها گاهی میتوانند به حالت اولیه خود بازگردند و عملکردهای زیستی آنها بازیابی شود. با این حال، در بسیاری از موارد، دناتوراسیون برگشتناپذیر است. برای مثال، پروتئینهای یک تخممرغ آبپز را نمیتوان دوباره به حالت خام بازگرداند.
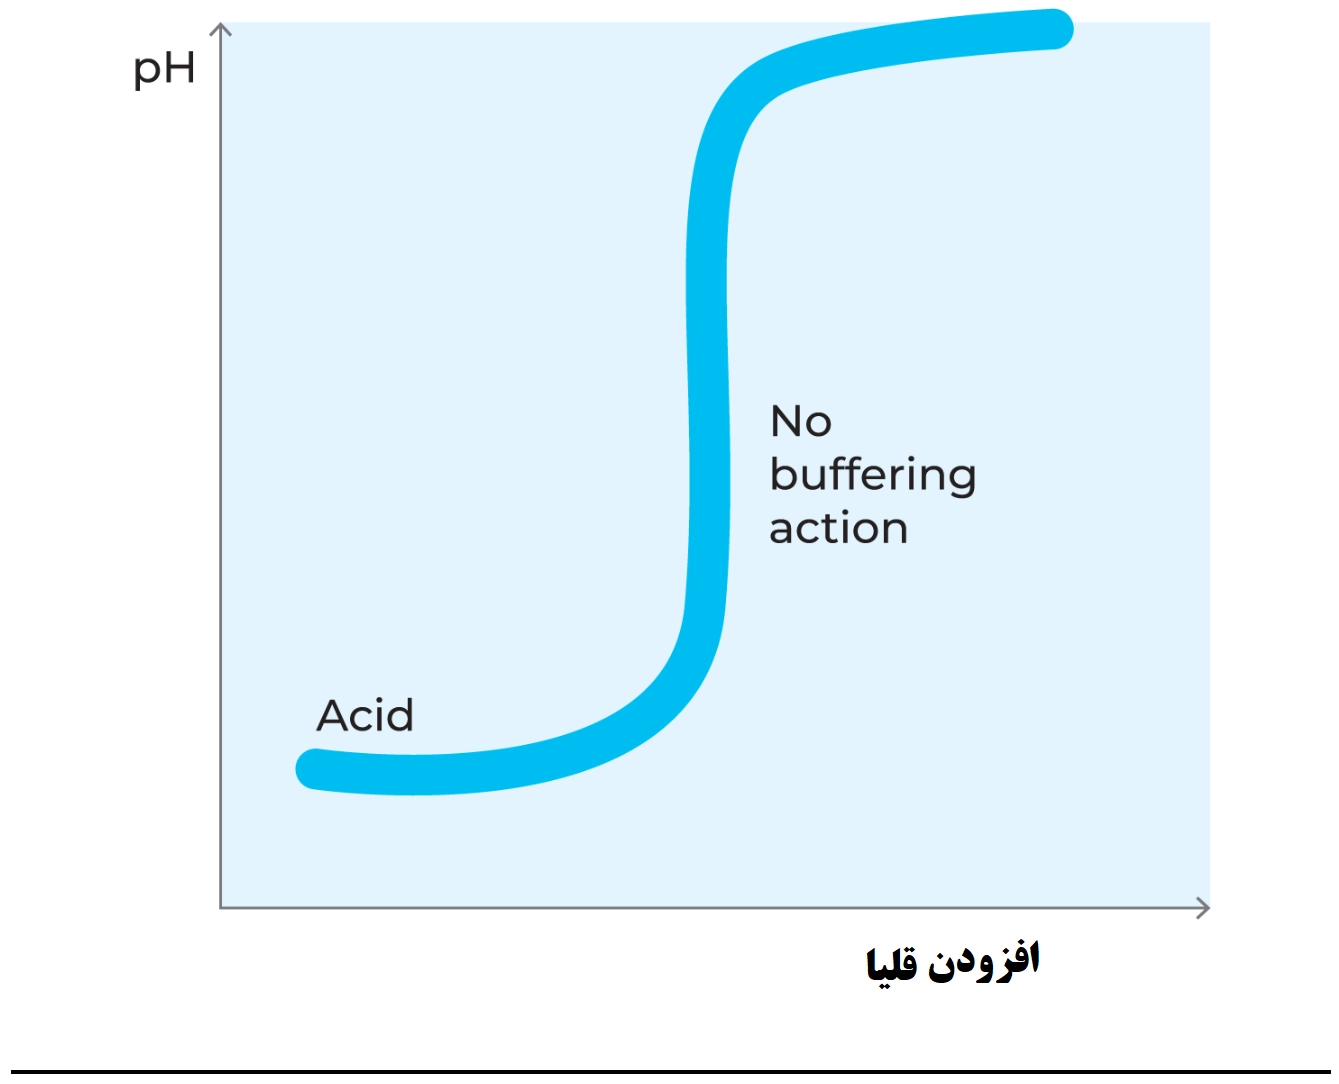
شکل ۲.۳۷ – اگر یک باز به اسید افزوده شود، PH محلول بلافاصله افزایش مییابد — هیچ اثر بافری وجود ندارد.
شیر یک محلول بافری است
شیر حاوی مقدار زیادی مواد است که میتوانند مانند اسیدهای ضعیف یا بازهای ضعیف عمل کنند؛ برای مثال اسید لاکتیک، اسید سیتریک و اسید فسفریک و نمکهای مربوط به آنها یعنی لاکتاتها، سیتراتها و فسفاتها. در شیمی، به چنین سامانهای محلول بافری گفته میشود، زیرا در محدودهای معین، با افزودن اسید یا باز، PH تقریباً ثابت میماند. این اثر را میتوان با ویژگیهای خاص پروتئینها توضیح داد.
وقتی شیر اسیدی میشود، تعداد زیادی یون هیدروژن (H+) به آن افزوده میشود. این یونها تقریباً همگی توسط گروههای آمینی در زنجیرههای جانبی اسیدهای آمینه جذب میشوند و به صورت یونهای NH3+ در میآیند. در نتیجه، PH تقریباً تحت تأثیر قرار نمیگیرد، زیرا افزایش غلظت یونهای آزاد هیدروژن بسیار کم است.
وقتی به شیر باز افزوده میشود، یونهای هیدروژن (H+) موجود در گروههای COOH زنجیرههای جانبی آزاد میشوند و به گروه COO– تبدیل میگردند. به این دلیل، pH عملاً ثابت میماند؛ همانطور که در شکل ۲.۳۸ دیده میشود. هرچه باز بیشتری افزوده شود، یونهای هیدروژن بیشتری آزاد میشوند.
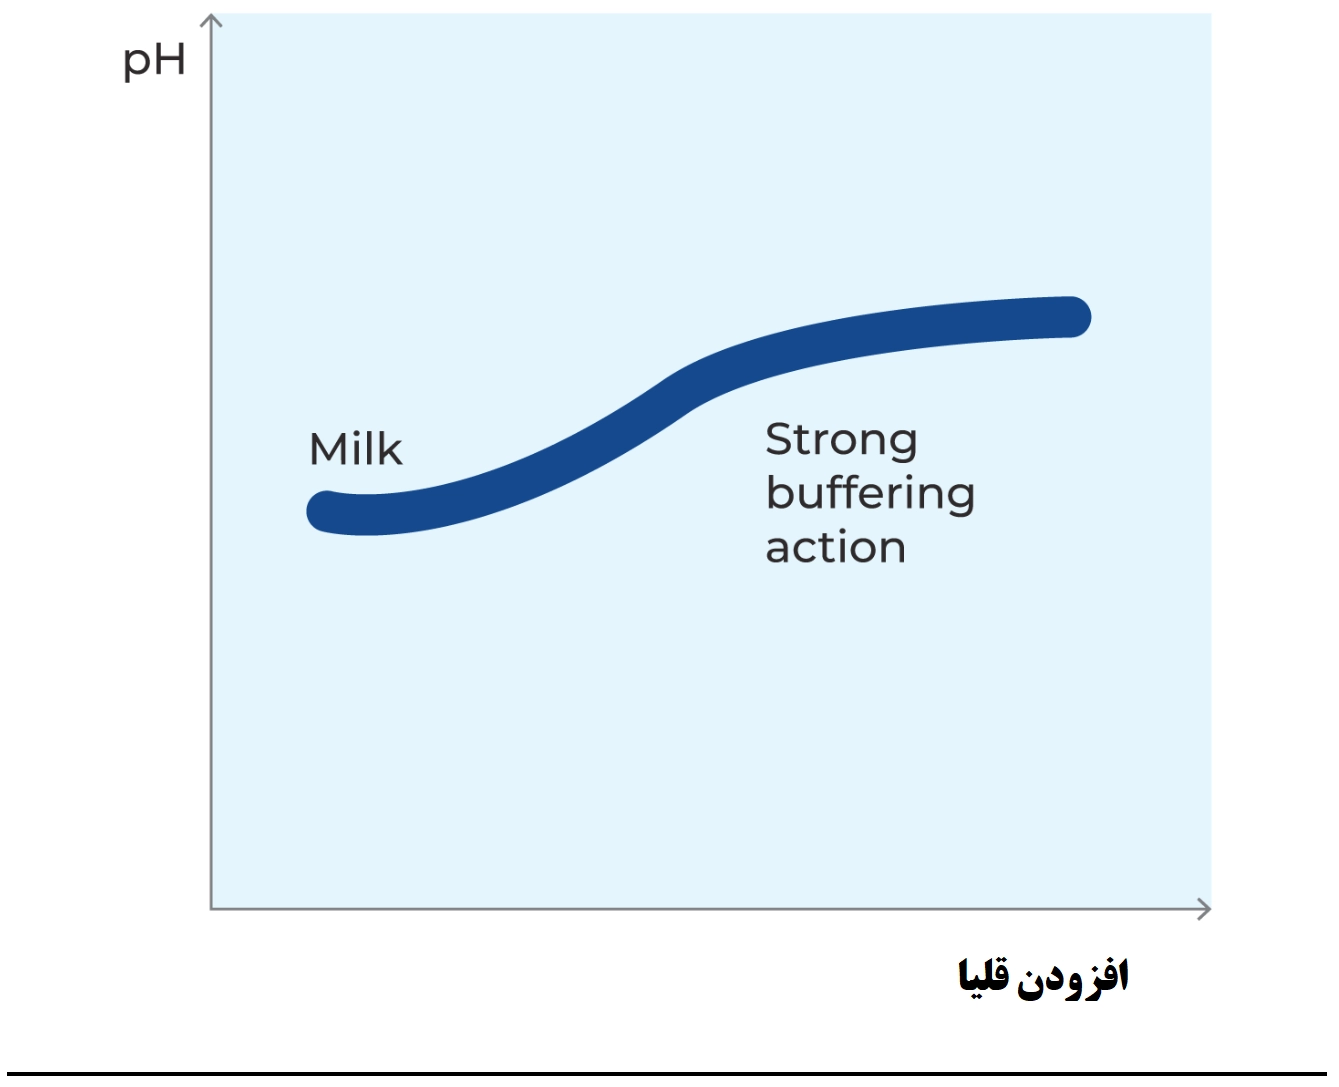
شکل ۲.۳۸ – اگر یک باز به شیر افزوده شود ، pH بهآرامی تغییر میکند — در شیر اثر بافری قابلتوجهی وجود دارد.
سایر اجزای شیر نیز این توانایی را دارند که یونها را به خود متصل کنند یا آنها را آزاد سازند؛ به همین دلیل، وقتی اسید یا باز به شیر افزوده میشود، pH بهآرامی تغییر میکند.
تقریباً تمام ظرفیت بافری در شیری که بهعلت نگهداری طولانی در دمای بالا از قبل اسیدی شده است، مصرف میشود. در چنین حالتی، فقط مقدار کمی اسید کافی است تا pH را تغییر دهد.
آنزیمها در شیر
آنزیمها پروتئینهایی هستند که توانایی آغاز واکنشهای شیمیایی و اثر گذاشتن بر مسیر و سرعت این واکنشها را دارند. آنها این کار را بدون اینکه مصرف شوند انجام میدهند. به همین دلیل، گاهی به آنها «بیوکاتالیزگر» نیز گفته میشود. عملکرد یک آنزیم در شکل ۲.۳۹ نشان داده شده است.
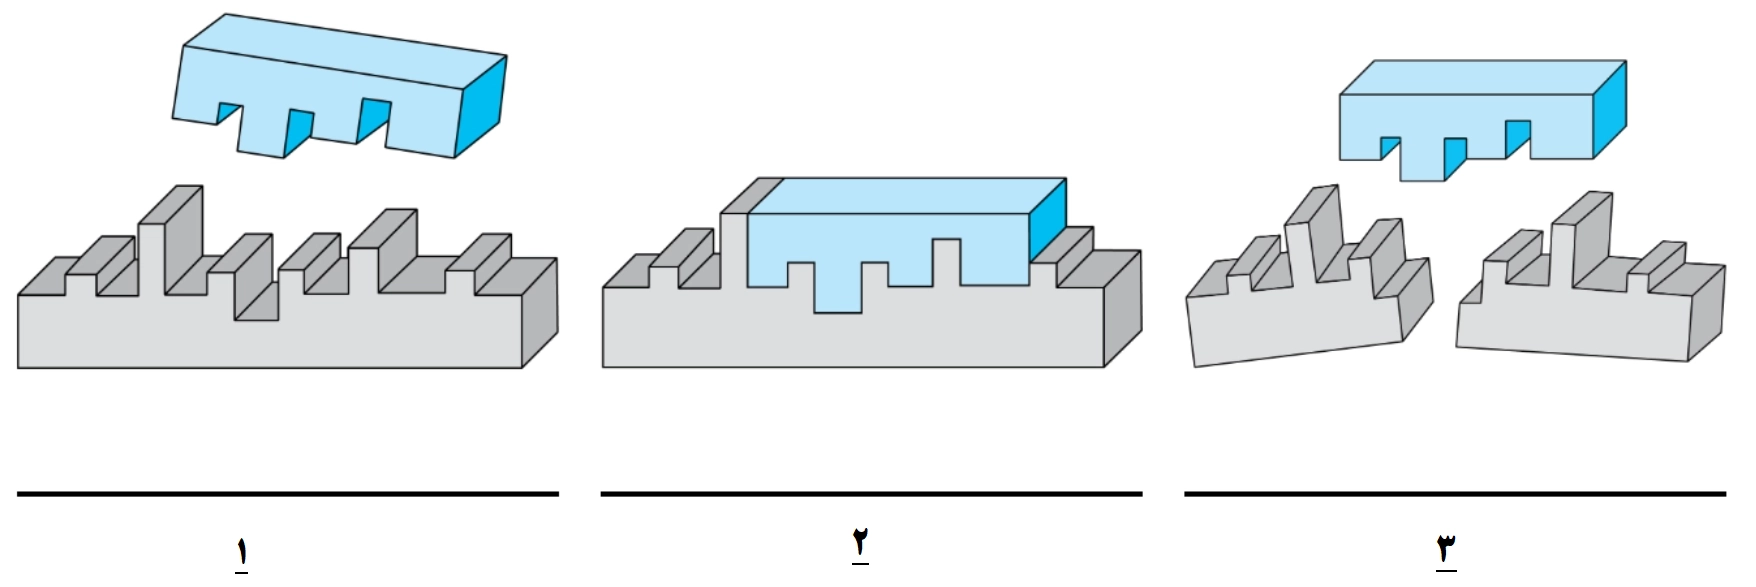
شکل ۲.۳۹ : 1.یک آنزیم مشخص فقط میتواند مولکولهای معینی را تجزیه کند، آن هم فقط در پیوندهای مشخص.
2. آنزیم در بخش خاصی از زنجیره مولکول قرار میگیرد؛ جایی که پیوند را تضعیف میکند.
3. مولکول شکافته میشود. سپس آنزیم آزاد میشود تا به همان روش به مولکول دیگری متصل شده و آن را نیز تجزیه کند.
________________________________________
اثر آنزیمها اختصاصی است؛ هر نوع آنزیم فقط یک نوع واکنش را کاتالیز میکند. دو عامل که بهطور چشمگیری بر فعالیت آنزیمی اثر میگذارند، دما و PH هستند. بهطور کلی، آنزیمها در یک بازه دمایی بهینه، بین ۲۵ تا ۵۰ درجه سانتیگراد، بیشترین فعالیت را دارند.
فعالیت آنها اگر دما از مقدار بهینه بالاتر رود کاهش مییابد و در جایی بین ۵۰ تا ۱۲۰ درجهٔ سانتیگراد کاملاً متوقف میشود. در این دماها، آنزیمها کموبیش بهطور کامل دناتوره میشوند (غیرفعال میگردند). دمای غیرفعال شدن از یک نوع آنزیم به نوع دیگر متفاوت است؛ و همین ویژگی بهطور گسترده برای تعیین درجه پاستوریزه شدن شیر مورد استفاده قرار گرفته است. آنزیمها همچنین بازههای PH بهینه خود را دارند؛ بعضی در محلولهای اسیدی بهتر عمل میکنند و بعضی دیگر در محیطهای قلیایی. آنزیمهای موجود در شیر یا از پستان گاو منشأ میگیرند یا از باکتریها. دسته نخست، اجزای طبیعی شیر هستند و «آنزیمهای اصلی» نامیده میشوند. دسته دوم، یعنی آنزیمهای باکتریایی، از نظر نوع و مقدار، بسته به ماهیت و اندازه جمعیت باکتریایی، متفاوتاند. چندین آنزیم موجود در شیر برای آزمون و کنترل کیفیت به کار میروند. از مهمترین آنها میتوان به پراکسیداز، کاتالاز، فسفاتاز و لیپاز اشاره کرد.
پراکسیداز
پراکسیداز اکسیژن را از پراکسید هیدروژن (H2O2) به مواد دیگری که بهراحتی اکسید میشوند منتقل میکند. اگر شیر برای چند ثانیه تا ۸۰ درجه سانتیگراد گرم شود، این آنزیم غیرفعال میشود؛ و از این ویژگی میتوان برای اثبات وجود یا نبود پراکسیداز در شیر استفاده کرد و در نتیجه بررسی نمود که آیا دمای پاستوریزاسیون بالاتر از ۸۰ درجه سانتیگراد رسیده است یا نه. این آزمایش «آزمایش پراکسیداز اشتورخ» نام دارد.
کاتالاز
کاتالاز پراکسید هیدروژن را به آب و اکسیژن آزاد تجزیه میکند. با تعیین مقدار اکسیژنی که این آنزیم میتواند در شیر آزاد کند، میتوان مقدار کاتالاز موجود در شیر را برآورد کرد و فهمید که آیا شیر از حیوانی با پستان سالم بهدست آمده است یا نه. شیر حاصل از پستانهای بیمار مقدار زیادی کاتالاز دارد، در حالی که شیر تازه حاصل از پستان سالم فقط مقدار ناچیزی از آن را در بر میگیرد. با این حال، باکتریهای زیادی نیز وجود دارند که این نوع آنزیم را تولید میکنند. کاتالاز با حرارت دادن در ۷۵ درجه سانتیگراد به مدت ۶۰ ثانیه از بین میرود.
فسفاتاز
فسفاتاز این ویژگی را دارد که میتواند استرهای اسید فسفریک خاصی را به اسید فسفریک و الکلهای مربوطه تجزیه کند. وجود فسفاتاز در شیر را میتوان با افزودن یک استر اسید فسفریک و یک شناساگر (معرف) که در واکنش با الکل آزاد شده تغییر رنگ میدهد، تشخیص داد. تغییر رنگ نشان میدهد که شیر حاوی فسفاتاز است. فسفاتاز توسط پاستوریزاسیون معمولی (۷۲ درجهٔ سانتیگراد به مدت ۱۵ تا ۲۰ ثانیه) از بین میرود، بنابراین میتوان از «آزمون فسفاتاز» برای تعیین اینکه آیا دمای پاستوریزاسیون واقعاً حاصل شده است یا خیر، استفاده کرد. آزمون روتینی که در کارخانههای لبنیات استفاده میشود، «آزمون فسفاتاز شارر» (Scharer) نام دارد.
آزمون فسفاتاز بهتر است بلافاصله پس از عملیات حرارتی انجام شود. در غیر این صورت، شیر باید تا دمای زیر ۵+ درجه سانتیگراد سرد شده و تا زمان تحلیل در همان دما نگهداری شود. تحلیل باید در همان روز انجام گیرد؛ در غیر این صورت پدیدهای به نام «واکنشپذیری مجدد» (Reactivation) ممکن است رخ دهد؛ یعنی آنزیم غیرفعالشده دوباره فعال میشود و نتیجه آزمون را مثبت نشان میدهد. خامه در این زمینه بهویژه حساستر است.
لیپاز چربی را به گلیسرول و اسیدهای چرب آزاد تجزیه میکند (شکل ۲٫۴۰ را ببینید). وجود اسیدهای چرب آزادِ بیش از حد در شیر و محصولات لبنی منجر به طعم تند و ناخوشایند (Rancid) میشود. به نظر میرسد اثر این آنزیم در بیشتر موارد بسیار ضعیف است، اگرچه شیر برخی از گاوها ممکن است فعالیت لیپازی شدیدی نشان دهد. تصور میشود که مقدار لیپاز در شیر با نزدیک شدن به پایان دوره شیردهی افزایش مییابد. لیپاز تا حد زیادی توسط پاستوریزاسیون غیرفعال میشود، اما برای غیرفعالسازی کامل، به دماهای بالاتری نیاز است. بسیاری از میکروارگانیسمها لیپاز تولید میکنند. این موضوع میتواند مشکلات جدی ایجاد کند، زیرا این آنزیم در برابر حرارت بسیار مقاوم است.
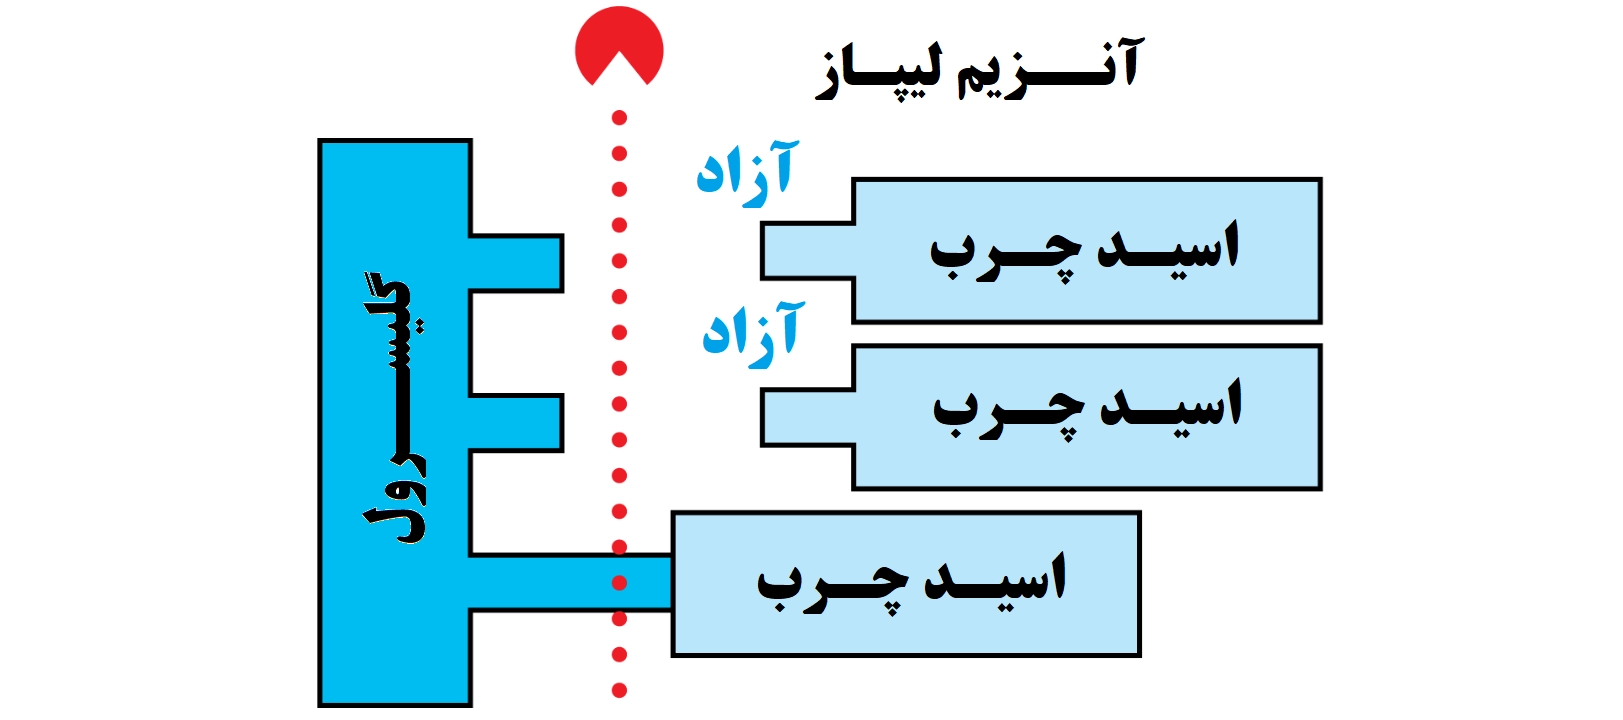
شکل ۲.۴۰ – تصویر شماتیک (نموداری) از تجزیه چربی توسط آنزیم لیپاز
لاکتوز در شیر
لاکتوز قندی است که تنها در شیر یافت میشود؛ این ماده متعلق به گروهی از ترکیبات شیمیایی آلی به نام «کربوهیدراتها» است. کربوهیدراتها مهمترین منبع انرژی در رژیم غذایی ما هستند. برای مثال، نان و سیبزمینی سرشار از کربوهیدرات هستند و ذخیرهای از مواد مغذی را فراهم میکنند. این مواد به ترکیبات پرانرژی تجزیه میشوند که میتوانند در تمامی واکنشهای بیوشیمیایی شرکت کنند و انرژی مورد نیاز را تأمین نمایند. کربوهیدراتها همچنین مواد اولیهای را برای سنتز برخی ترکیبات شیمیایی مهم در بدن فراهم میکنند. آنها در عضلات به شکل «گلیکوژن عضلانی» و در کبد به شکل «گلیکوژن کبدی» وجود دارند. گلیکوژن نمونهای از یک کربوهیدرات با وزن مولکولی بسیار بالاست. نمونههای دیگر شامل نشاسته و سلولز هستند. چنین کربوهیدراتهای مرکبی را «پلیساکارید» مینامند که دارای مولکولهای غولپیکری هستند که از تعداد زیادی مولکول گلوکز ساخته شدهاند. در گلیکوژن و نشاسته، مولکولها اغلب شاخهدار هستند، در حالی که در سلولز، به شکل زنجیرههای بلند و مستقیم قرار دارند.
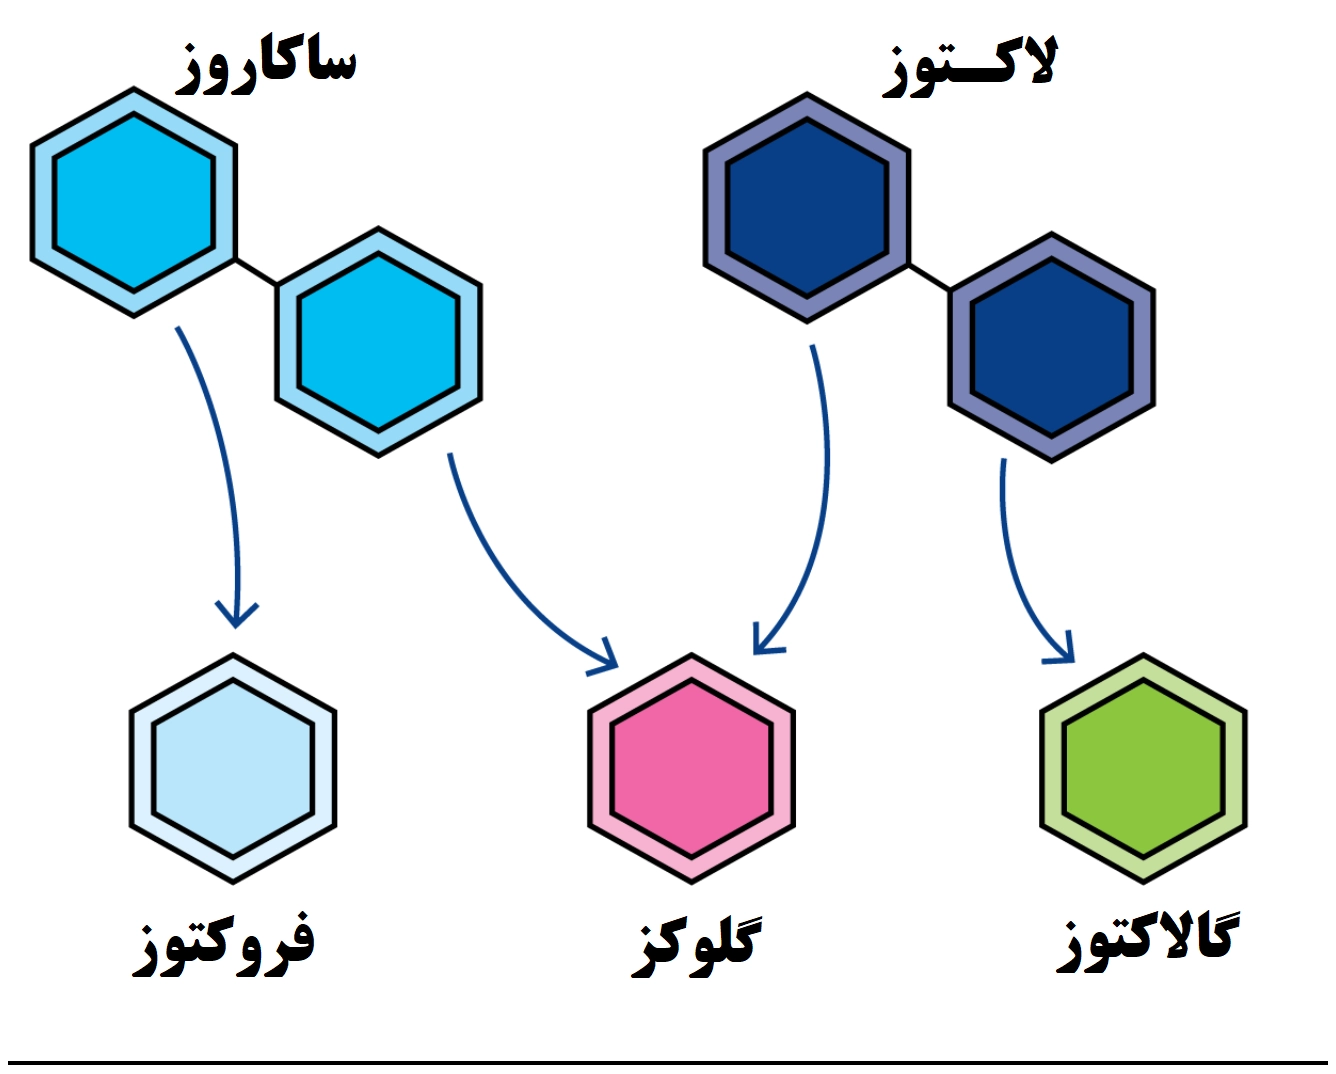
شکل ۲.۴۱ – لاکتوز و ساکاروز به گالاکتوز، گلوکز و فروکتوز تجزیه میشوند.
شکل ۲.۴۱ برخی دیساکاریدها، یعنی کربوهیدراتهای تشکیلشده از دو نوع مولکول قند را نشان میدهد. مولکولهای ساکاروز (شکر معمولی نیشکر یا چغندر) از دو قند ساده (مونوساکارید) یعنی فروکتوز و گلوکز تشکیل شدهاند. لاکتوز (قند شیر) یک دیساکارید است که مولکول آن حاوی مونوساکاریدهای گلوکز و گالاکتوز میباشد. جدول ۲٫۳ نشان میدهد که محتوای لاکتوز شیر بین ۳٫۶ تا ۵٫۵ درصد متغیر است.
شکل ۲.۴۲ نشان میدهد که وقتی لاکتوز توسط باکتریهای اسید لاکتیک تجزیه میشود، چه اتفاقی میافتد. لاکتوز به داخل سلول باکتری منتقل میشود، جایی که آنزیمها به لاکتوز حمله کرده و آن را به گلوکز و گالاکتوز میشکنند. سپس آنزیمهای دیگرِ باکتریهای اسید لاکتیک به گلوکز و گالاکتوز حمله میکنند؛ این قندها از طریق واکنشهای واسطهای پیچیده، عمدتاً به اسید لاکتیک تبدیل میشوند. آنزیمهای دخیل در این واکنشها به ترتیب خاصی عمل میکنند. این همان چیزی است که هنگام ترش شدن شیر رخ میدهد؛ لاکتوز به اسید لاکتیک تخمیر میشود. سایر میکروارگانیسمهای موجود در شیر، محصولات تجزیه (breakdown products) دیگری تولید میکنند.
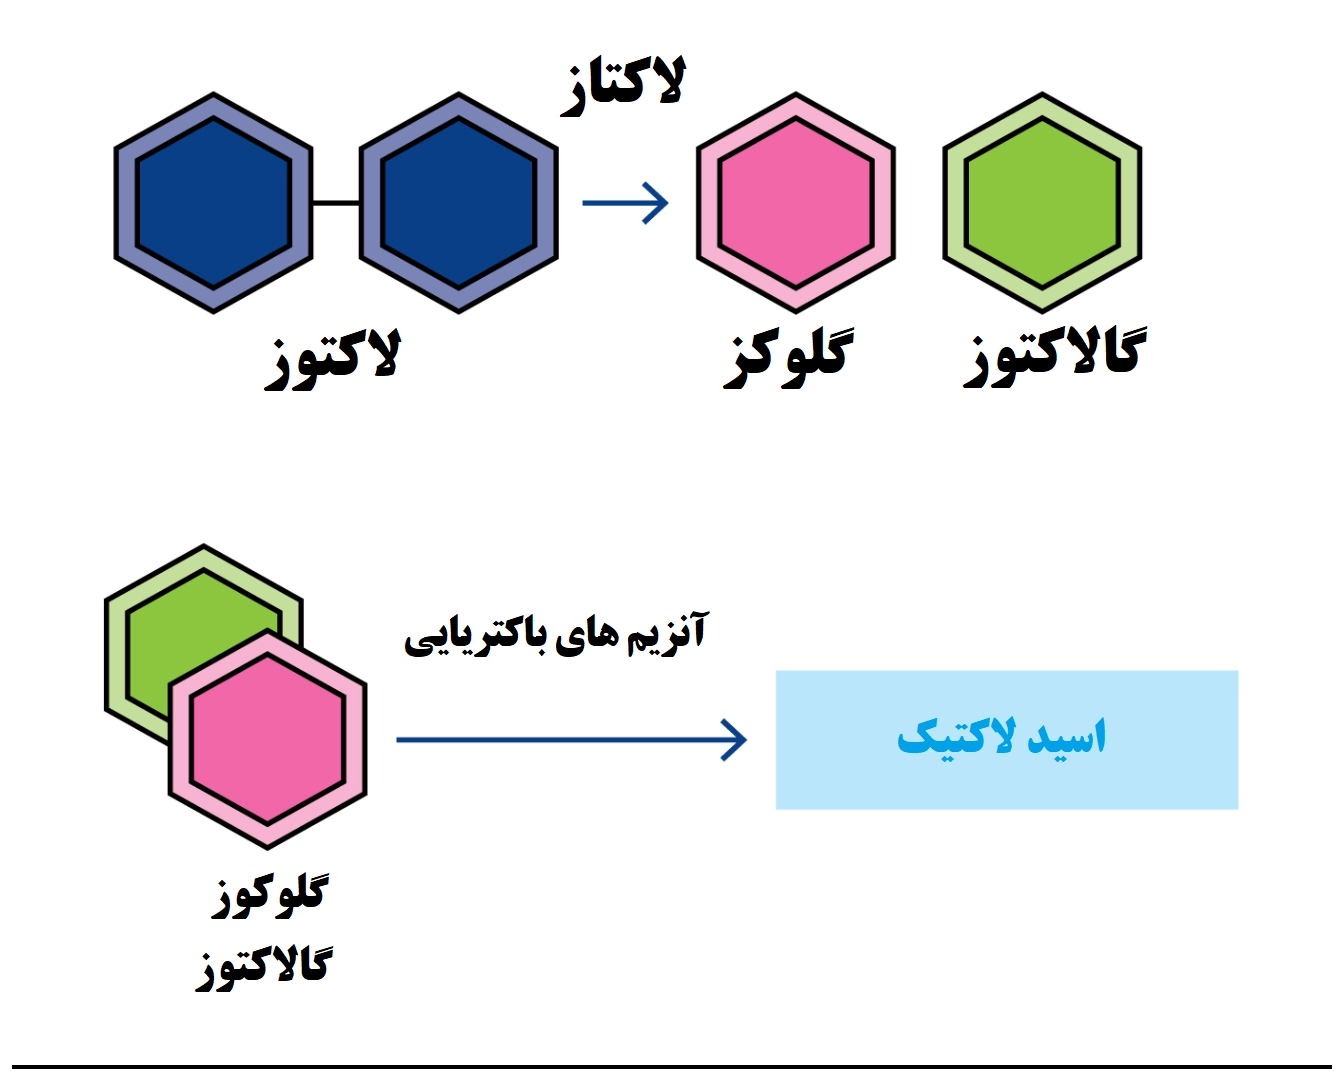
شکل ۲.۴۲ – تجزیه لاکتوز توسط فعالیت آنزیمی و تشکیل اسید لاکتیک
هنگامی که شیر تا دمای بالا گرم شده و در آن دما نگهداری شود، قهوهای شده و طعم کارامل به خود میگیرد. این فرآیند «کاراملی شدن» (Caramelization) نامیده میشود و نتیجهٔ یک واکنش شیمیایی بین لاکتوز و پروتئینهاست که «واکنش میلارد» (Maillard reaction) نام دارد.
واکنشهای میلارد، که به دلیل انجام شدن بدون دخالت آنزیمها، «واکنشهای قهوهای شدن غیرآنزیمی» نیز نامیده میشوند، با عملیات حرارتی آغاز شده و در طول مدت نگهداری محصول ادامه مییابند. سینتیک (سرعت و پیشرفت) این واکنش مستقیماً به عواملی مانند شدت حرارت و دمای نگهداری بستگی دارد. لاکتوز در آب محلول است و در شیر به صورت محلول مولکولی وجود دارد. در فرآیند پنیرسازی، بیشتر لاکتوز به صورت محلول در آبپنیر (whey) باقی میماند. تبخیر آبپنیر در تولید پنیرهای حاصل از آبپنیر (مانند پنیر ریکوتا یا پنیر قهوهای)، غلظت لاکتوز را باز هم بیشتر میکند. لاکتوز به شیرینیِ سایر قندها نیست؛ برای مثال، حدود ۳۰ برابر کمتر از شکر (نیشکر) شیرین است.
ویتامینهای موجود در شیر
ویتامینها مواد آلی هستند که با غلظتهای بسیار کم در گیاهان و جانوران یافت میشوند. آنها برای فرآیندهای حیاتیِ طبیعی ضروری هستند، اما بدن قادر به ساخت (سنتز) آنها نیست. ترکیب شیمیایی ویتامینها معمولاً بسیار پیچیده است، اگرچه امروزه ساختار بیشتر آنها شناختهشده است. ویتامینها با حروف بزرگ (انگلیسی)، که گاهی با زیرنویسهای عددی همراه هستند، نامگذاری میشوند؛ برای مثال A، B1 و B2. شیر منبع خوبی از ویتامینها است که بسته به شرایط، در مقادیر متفاوتی در آن وجود دارند.
از شناختهشدهترین آنها میتوان به ویتامینهای A، گروه B، C و D اشاره کرد. ویتامینهای A و D در چربی یا حلالهای چربی محلول هستند، در حالی که سایر ویتامینها در آب حل میشوند. از میان ویتامینهای محلول در چربی، A و D مهمترینها هستند. این ویتامینها بر بینایی و سلامت پوست تأثیر میگذارند. به دلایل طبیعی، محصولات لبنی کمچرب حاوی مقدار کمتری از این ویتامینها هستند. در بسیاری از کشورها، این کمبود در شیرهای کمچرب با «غنیسازی» (افزودن) ویتامینهای A و D جبران میشود تا سطح ویتامین آنها با شیر کامل (پرچرب) برابر شود.
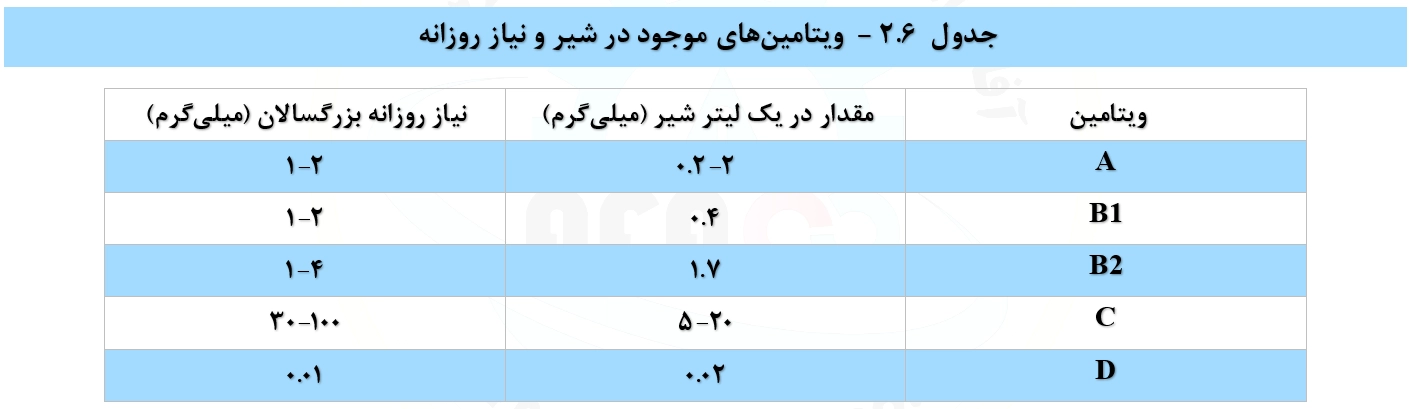
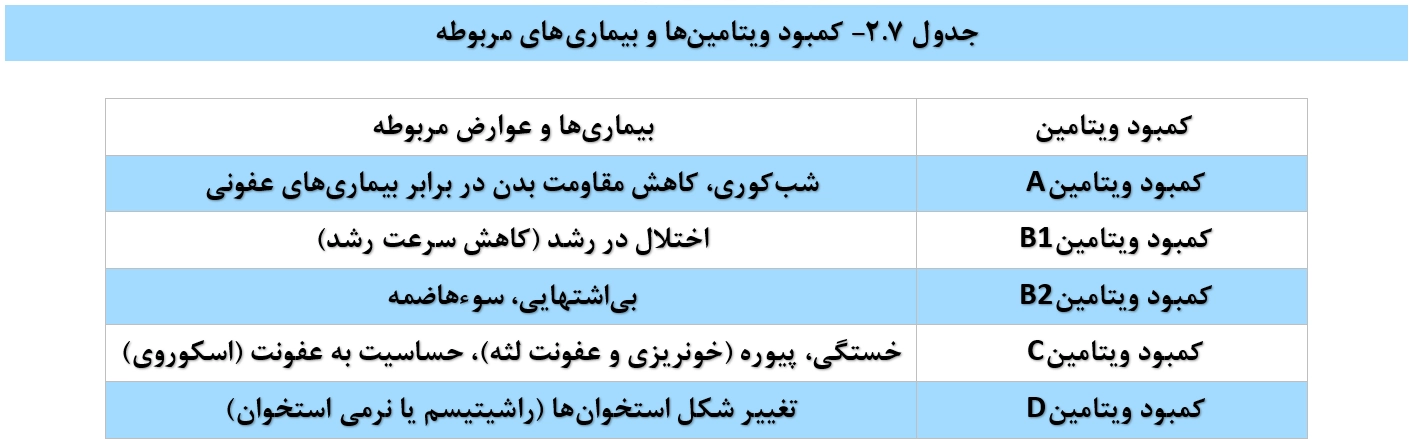
جدول ۲.۶ میزان ویتامینهای موجود در یک لیتر شیرِ عرضهشده در بازار و همچنین نیاز روزانه یک فرد بزرگسال به این ویتامینها را فهرست کرده است. این جدول نشان میدهد که شیر منبع خوبی از ویتامینها است. کمبود ویتامینها میتواند منجر به بیماریهای ناشی از سوءتغذیه شود (جدول ۲.۷ را ببینید).
مواد معدنی و نمکها در شیر
شیر حاوی تعدادی مواد معدنی است. غلظت کل آنها کمتر از ۱٪ است. نمکهای معدنی به صورت محلول در سرم شیر (سرم شیر یا بخش آبکی شیر) یا به شکل ترکیبات کازئینی وجود دارند. مهمترین نمکها، نمکهای کلسیم، سدیم، پتاسیم و منیزیم هستند. این نمکها به صورت فسفات، کلرید، سیترات و کازئینات یافت میشوند. نمکهای پتاسیم و کلسیم در شیر طبیعی فراوانترین هستند. مقادیر نمکهای موجود در شیر ثابت نیست. در اواخر دوره شیردهی، و بهویژه در موارد بیماری پستان، میزان کلرید سدیم افزایش مییابد و طعم شوری به شیر میدهد، در حالی که مقادیر سایر نمکها به همان نسبت کاهش پیدا میکند.
سایر اجزای شیر
شیر همواره حاوی سلولهای سوماتیک (گلبولهای سفید خون یا لکوسیتها) است. میزان این سلولها در شیرِ حاصل از پستان سالم پایین است، اما در صورت ابتلای پستان به بیماری، معمولاً متناسب با شدت بیماری افزایش مییابد. تعداد سلولهای سوماتیک در شیرِ حیوانات سالم، بهطور معمول کمتر از ۲۰۰,۰۰۰ سلول در میلیلیتر است، اما مقادیر تا ۴۰۰,۰۰۰ سلول در میلیلیتر نیز قابل قبول است.
شیر همچنین حاوی گازهایی است؛ حدود ۵ تا ۶ درصد حجمی در شیری که تازه از پستان دوشیده شده، اما هنگام رسیدن به کارخانه لبنیات، محتوای گاز ممکن است تا ۱۰ درصد حجمی نیز برسد. این گازها عمدتاً شامل دیاکسید کربن، نیتروژن و اکسیژن هستند.
آنها به سه حالت در شیر وجود دارند:
۱. محلول در شیر
۲. متصل و جدانشدنی از شیر
۳. پراکنده (معلق) در شیر
گازهای پراکنده و محلول، مشکل جدی در فرآوری شیر محسوب میشوند؛ چرا که اگر شیر حاوی گاز زیادی باشد، مستعد سوختن (چسبیدن و سوختن) بر روی سطوح حرارتی (مبدلهای حرارتی) است.
تغییرات در شیر و اجزای آن
تغییرات در طول نگهداری
چربی و پروتئین موجود در شیر ممکن است در طول نگهداری دچار تغییرات شیمیایی شوند. این تغییرات معمولاً از دو نوع هستند: اکسیداسیون و لیپولیز. محصولات حاصل از این واکنشها میتوانند باعث ایجاد طعمهای نامطلوب (Off-flavours)، بهویژه در شیر و کره شوند.
اکسیداسیون چربی
اکسیداسیون چربی منجر به ایجاد طعم فلزی میشود، در حالی که به کره طعم روغنی و پیهمانند (tallowy) میدهد. اکسیداسیون در محل پیوندهای دوگانه اسیدهای چرب غیراشباع رخ میدهد که در این میان، لسیتین بیشترین حساسیت را به این واکنش دارد. حضور نمکهای آهن و مس، شروع خوداکسیداسیون (Auto-oxidation) و ایجاد طعم فلزی را تسریع میکند؛ همانطور که وجود اکسیژن محلول و قرار گرفتن در معرض نور، بهویژه نور مستقیم خورشید یا نور لامپهای فلورسنت (مهتابی)، چنین اثری دارد.
اکسیداسیون چربی را میتوان تا حدی با فعالیت میکروارگانیسمهای موجود در شیر، پاستوریزاسیون در دمای بالای °C80 ، یا افزودنیهای آنتیاکسیدانی (عوامل کاهنده/احیاکننده) خنثی کرد. میکروارگانیسمهایی مانند باکتریهای اسید لاکتیک، اکسیژن را مصرف کرده و اثر احیاکنندگی دارند. طعم نامطلوب ناشی از اکسیداسیون در دماهای پایین بیشتر رخ میدهد، زیرا در این دماها، فعالیت این باکتریها کمتر است. همچنین انحلالپذیری اکسیژن در شیر در دماهای پایین بیشتر است. پاستوریزاسیون در دمای بالا نیز به خنثیسازی اکسیداسیون کمک میکند، زیرا با حرارت دادن شیر، ترکیبات احیاکننده شامل گروههای سولفیدریل (SH−) تشکیل میشوند.
طعم فلزی حاصل از اکسیداسیون در زمستان شایعتر از تابستان است. این امر تا حدی به دلیل دمای پایینتر محیط و تا حدی به دلیل تفاوت در جیره غذایی گاوها است. علوفه تابستانه سرشار از ویتامینهای A و C است که میزان مواد احیاکننده در شیر را افزایش میدهند.
در حضور نور و/یا یونهای فلزات سنگین، اسیدهای چرب در مراحل بعدی به آلدهیدها و کتونها تجزیه میشوند که باعث ایجاد طعمهای نامطلوبی مانند تندی اکسیداتیو (Oxidation rancidity) در محصولات لبنی پرچرب میگردند.
اکسیداسیون پروتئین
وقتی شیر در معرض نور قرار میگیرد، اسید آمینه متیونین با مشارکت پیچیده ریبوفلاوین (ویتامین B2) و اسید آسکوربیک (ویتامین C) به متیونال تجزیه میشود. متیونال یا 3-mercapto-methylpropionaldehyde عامل اصلی ایجاد طعم نوری یا Sunlight flavour است؛ به این طعم ویژه چنین نامی داده میشود. از آنجا که متیونین در شیر به صورت آزاد وجود ندارد و بهعنوان یکی از اجزای پروتئینهای شیر حضور دارد، برای ایجاد این طعم نامطلوب باید همزمان شکست یا تجزیه پروتئینها نیز رخ دهد.
عوامل مؤثر بر ایجاد طعم نوری
– شدت نور: نور خورشید و / یا نور مصنوعی، بهویژه نور لامپهای فلورسنت، این پدیده را تشدید میکند.
– مدت زمان مواجهه: هرچه زمان قرار گرفتن در معرض نور بیشتر باشد، احتمال ایجاد طعم نوری افزایش مییابد.
– ویژگیهای خود شیر: مشخص شده است که شیر هموژنیزه نسبت به شیر غیرهموژنیزه حساسیت بیشتری به ایجاد این طعم دارد.
نوع بستهبندی: بستهبندیهای کدر مانند پلاستیک و کاغذ، در شرایط معمول محافظت خوبی ایجاد میکنند.
همچنین برای آشنایی با روشهای حفظ کیفیت شیر پاستوریزه، به فصل 9 مراجعه کنید.
لیپولیز
تجزیه چربی به گلیسرول و اسیدهای چرب آزاد را لیپولیز مینامند. چربیِ دچار لیپولیز، طعم و بوی تند و ماندگیمانند (rancid) پیدا میکند که ناشی از وجود اسیدهای چرب آزادِ کموزن مولکولی، بهویژه اسید بوتیریک و اسید کاپروئیک است.
لیپولیز بر اثر عمل لیپازها ایجاد میشود و در دماهای بالای نگهداری تشدید میگردد. با این حال، لیپاز فقط زمانی میتواند عمل کند که گلبولهای چربی آسیب دیده باشند و چربی در معرض آن قرار گرفته باشد؛ همانطور که در شکل 2.43 دیده میشود. تنها در این صورت است که لیپاز میتواند به مولکولهای چربی حمله کرده و آنها را هیدرولیز کند. در عملیات معمول صنعت لبنیات، فرصتهای زیادی برای آسیب دیدن گلبولهای چربی وجود دارد؛ برای مثال بر اثر پمپاژ، همزدن و پاشش. بنابراین باید از تکان شدید شیر خام جلوگیری شود، زیرا این کار ممکن است خطر فعالیت گسترده لیپاز و آزاد شدن اسیدهای چرب را بههمراه داشته باشد و باعث تند شدن طعم شیر شود.
برای جلوگیری از تجزیه چربی، باید لیپاز با پاستوریزاسیون در دمای بالا غیرفعال شود. این فرایند، آنزیمهای اصلیِ شیر را بهطور کامل از بین میبرد. اما آنزیمهای باکتریایی مقاومتر هستند و حتی فرایند UHT نیز نمیتواند آنها را بهطور کامل نابود کند.
( UHT = Ultra High Temperature، یعنی حرارتدهی در حدود 135 تا 150 درجه سانتیگراد یا بیشتر برای چند ثانیه)
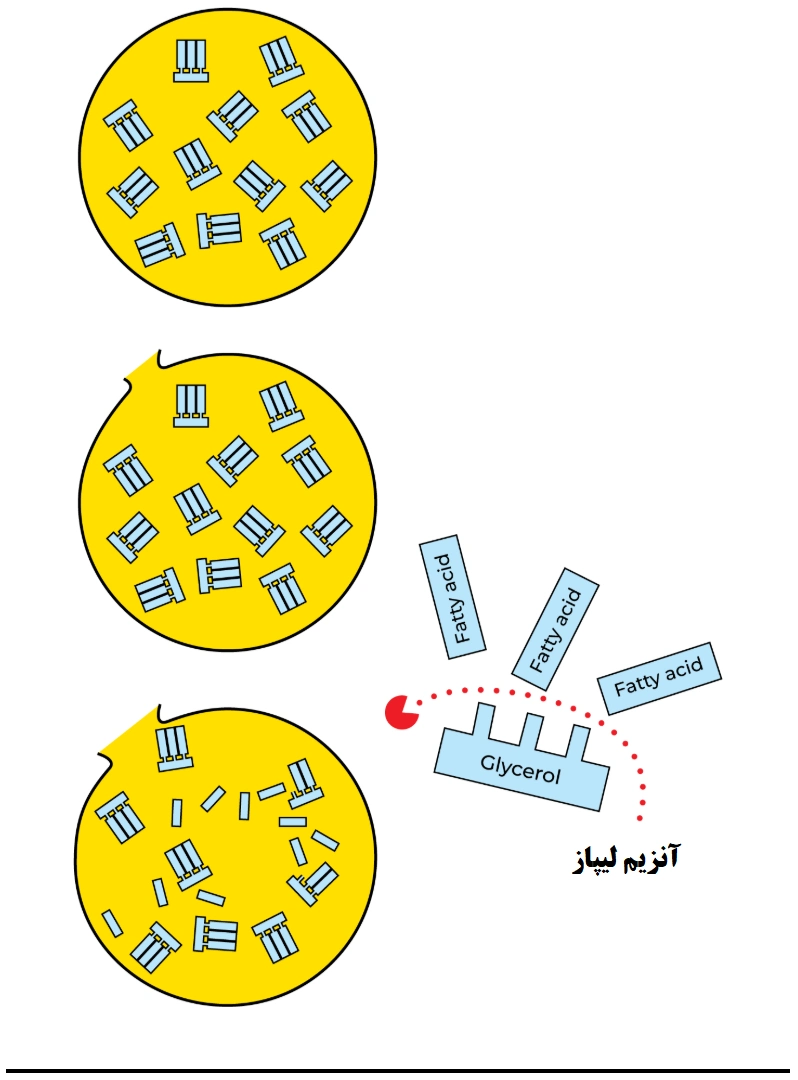
شکل 2.43 – وقتی غشاهای گلبولهای چربی آسیب میبینند، لیپولیز میتواند اسیدهای چرب را آزاد کند.
اثرات عملیات حرارتی
شیر در کارخانه لبنیات تحت عملیات حرارتی قرار میگیرد تا هرگونه میکروارگانیسم بیماریزای احتمالی موجود در آن از بین برود. عملیات حرارتی همچنین باعث بروز تغییراتی در اجزای تشکیلدهنده شیر میشود. هرچه دما بالاتر و مدت زمان مواجهه با حرارت طولانیتر باشد، این تغییرات نیز بیشتر خواهد بود. در محدودههای مشخصی، زمان و دما میتوانند یکدیگر را متعادل کنند؛ به این معنا که حرارتدهی کوتاه در دمای بالا میتواند تأثیری مشابه با مواجهه طولانیتر در دمای پایینتر داشته باشد. بنابراین در بحث عملیات حرارتی، همواره باید به هر دو عامل زمان و دما توجه کرد.
چربی
از بین ترکیبات اصلی شیر، چربی احتمالاً کمترین تأثیر را از حرارت میپذیرد. با این حال، تغییرات ناشی از حرارت در چربی شیر، بهویژه در ارتباط با ویژگیهای فیزیکی آن، رخ میدهد. اصلیترین تأثیر عملیات حرارتی بر چربی شیر، مربوط به فرایند «خامه بستن» (Creaming) یا تمایل گلبولهای چربی به تجمع و صعود به سطح شیر است.
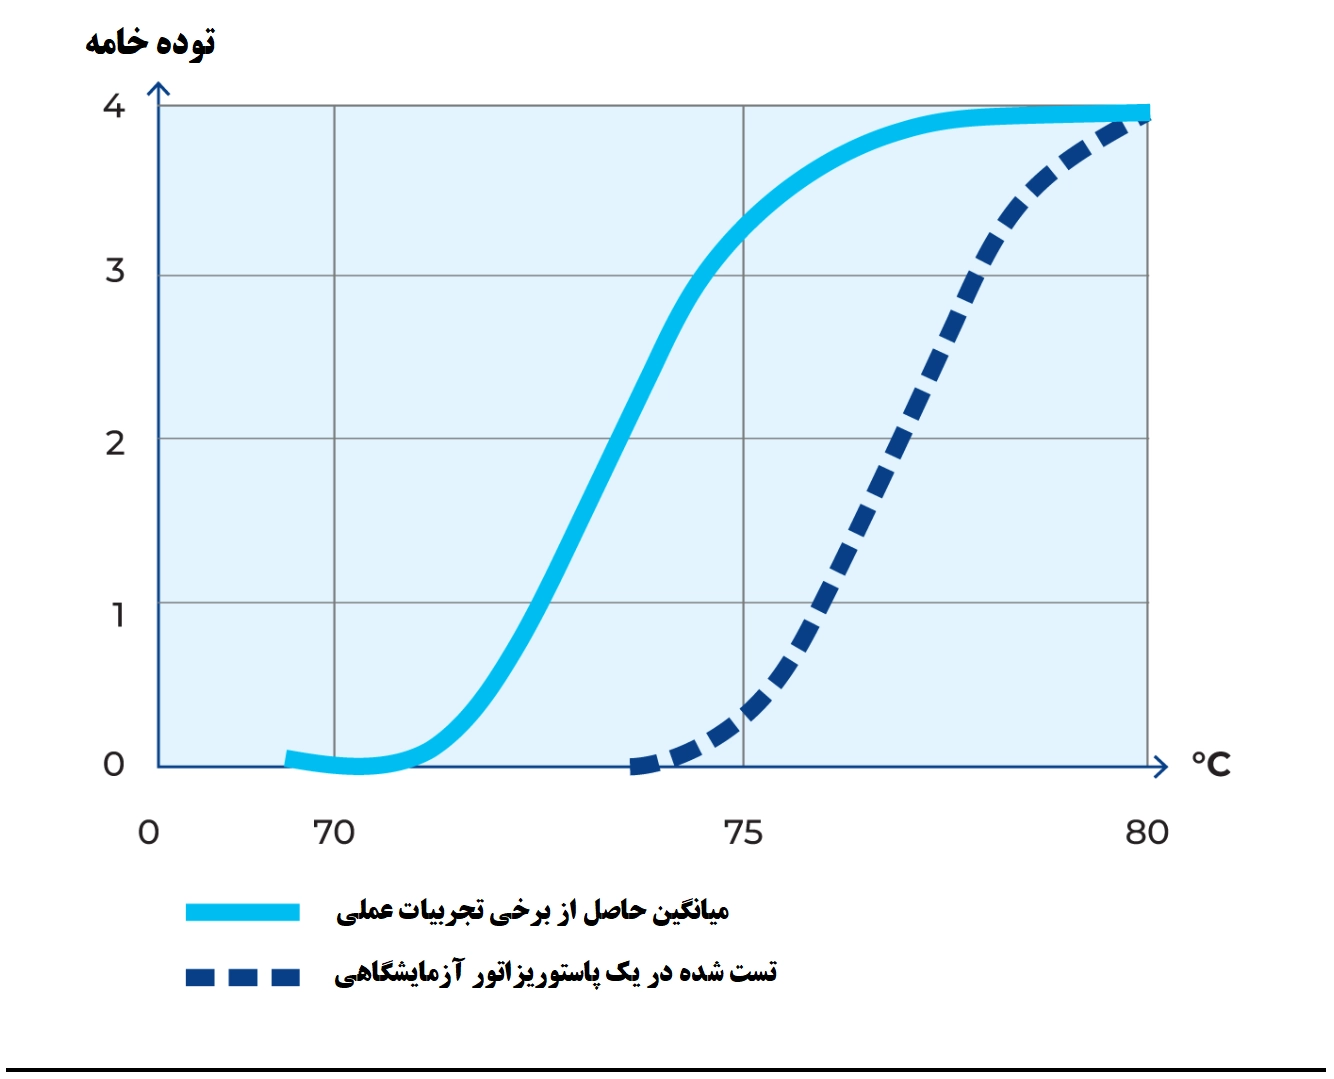
شکل 2.44 – تشکیل توده/گِره خامهای در شیر بر حسب دمای پاستوریزاسیون.
مقیاس از 0 (بدون اثر) تا 4 (توده خامهای کاملاً جامد). تمام عملیات پاستوریزاسیون از نوع کوتاهزمان بوده است (حدود 15 ثانیه).
منبع: Thomé و همکاران.
تشکیل پلاگ خامه (Cream Plug) نشان داده شده است که هنگامی رخ میدهد که شیر به مدت ۱۵ ثانیه در دمای ۷۰ تا ۸۰ درجه سانتیگراد پاستوریزه شود (Thomé و همکاران، Milchwissenschaft، جلد ۱۳، صفحه ۱۱۵، سال ۱۹۵۸)؛ به شکل ۲٫۴۴ مراجعه شود.
نظریههای مختلفی در اینباره مطرح شدهاند، اما به نظر میرسد که چربی آزادشده، هنگامی که گویچههای چربی با یکدیگر برخورد میکنند، بهصورت یک عامل سیمانی عمل کرده و آنها را به هم متصل میکند. برای جلوگیری از تشکیل پلاگ خامه، هموژنیزاسیون توصیه میشود.
Fink و H.G. Kessler (Milchwissenschaft، جلد ۴۰، صفحات ۶–۷، سال ۱۹۸۵) نشان دادهاند که در خامه با ۳۰٪ چربی، چه در حالت هموژنیزهنشده و چه هموژنیزهشده، هنگامی که محصول تا دماهای ۱۰۵ تا ۱۳۵ درجه سانتیگراد گرم میشود، چربی آزاد از گویچههای چربی نشت میکند.
اعتقاد بر این است که این پدیده در اثر ناپایدار شدن غشای گویچههای چربی و در نتیجه افزایش نفوذپذیری آنها رخ میدهد؛ بهطوری که چربی آزادِ قابل استخراج، بهعنوان یک عامل چسباننده/سیمانی میان گویچههای چربیِ در حال برخورد عمل کرده و سبب تشکیل خوشههای پایدار میشود.
در دماهای بالاتر از ۱۳۵ درجه سانتیگراد، پروتئینهای رسوبکرده بر روی غشای گویچههای چربی، یک شبکه پروتئینی تشکیل میدهند که غشا را متراکمتر و کمنفوذپذیرتر میکند. بنابراین، در فرایند UHT برای محصولات با چربی بالا، انجام هموژنیزاسیون پس از استریلیزر توصیه میشود.
پروتئین
کازئین پروتئین اصلی شیر است و در محدودههای معمول PH، غلظت نمک و مقدار پروتئین، بهطور کلی از نظر حرارتی دناتورهپذیر تلقی نمیشود.
در مقابل، پروتئینهای آبپنیر، بهویژه β-لاکتوگلوبولین که حدود ۵۰٪ از کل پروتئینهای آبپنیر را تشکیل میدهد، نسبتاً به حرارت حساساند. دناتوره شدن آنها از حدود ۶۵ درجه سانتیگراد آغاز میشود و هنگامی که پروتئینهای آبپنیر به مدت ۵ دقیقه در ۹۰ درجه سانتیگراد حرارت ببینند، این دناتوراسیون تقریباً کامل میشود.
دناتوراسیون حرارتی پروتئینهای آب پنیر یک واکنش برگشت ناپذیر است. پروتئینهایی که بهصورت تصادفی کلافخوردهاند، « باز » میشوند و به ویژه β-لاکتوگلوبولین از جمله از طریق پیوندهای گوگردی/دیسولفیدی به زنجیره بیرونزده κ-کازئین متصل میشود. این دگرگونیِ بسیار تعمیمیافته در شکل ۲٫۴۵ نشان داده شده است. مسدود شدن بخش قابلتوجهی از κ-کازئین، در مایهبندی شیر اختلال ایجاد میکند؛ زیرا رنت مورد استفاده در پنیرسازی در انجام عمل خود، یعنی شکافتن κ-کازئین از میسلهای کازئین، با مانع مواجه میشود. هرچه دمای پاستوریزاسیون در زمان نگهداری ثابت بالاتر باشد، دلمه (coagulum) نرمتر خواهد شد. این پدیده در تولید پنیرهای نیمهسخت و سخت نامطلوب است. با این حال، به دلیل احتمال زنده ماندن و تکثیر باکتریهای بیماریزا در پنیر تهیهشده از شیر خام ( بهویژه Listeria monocytogenes ) توصیه میشود شیر مورد استفاده برای پنیرسازی، به دلایل ایمنی غذایی، در ۷۲ درجه سانتیگراد به مدت ۱۵ تا ۲۰ ثانیه پاستوریزه شود. البته پنیر را میتوان از شیر خام نیز تولید کرد، اما در این صورت تولید آن تحت کنترل سختگیرانه قوانین ملی قرار دارد.
در شیری که برای تولید فرآوردههای تخمیری مانند ماست و محصولات مشابه در نظر گرفته میشود، دناتوراسیون پروتئینهای آبپنیر و برهمکنش آنها با کازئین، که در ۹۰ تا ۹۵ درجه سانتیگراد به مدت ۳ تا ۵ دقیقه حاصل میشود، از طریق کاهش سینرزیس و بهبود ویسکوزیته به ارتقای کیفیت محصول کمک میکند. شیری که در ۷۵ درجه سانتیگراد به مدت ۲۰ تا ۶۰ ثانیه حرارت داده شود، بهتدریج بوی و طعم پخته پیدا میکند. این حالت ناشی از آزاد شدن ترکیبات گوگرددار از β-لاکتوگلوبولین و سایر پروتئینهای حاوی گوگرد، و نیز غیرفعال شدن لیپوپروتئینها است.
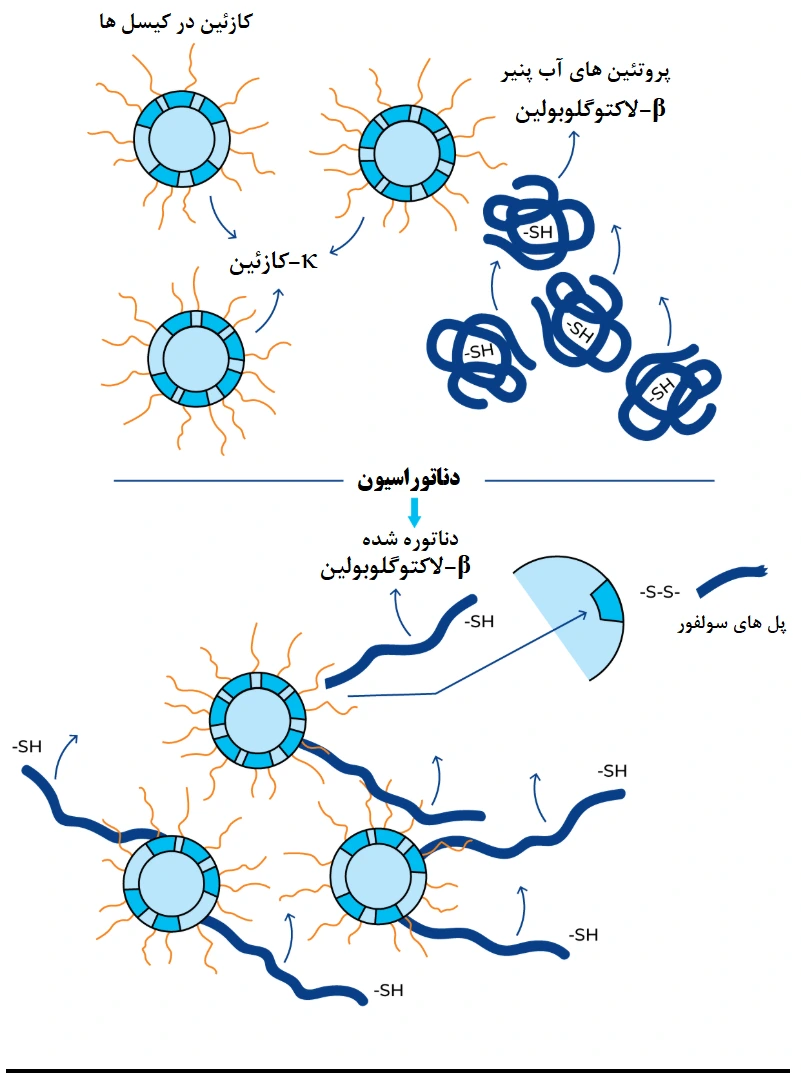
شکل ۲.۴۵ – در طی دناتوره شدن، κ-کازئین به β-لاکتوگلوبولین متصل میشود.
آنزیمها
آنزیمها را میتوان در اثر حرارت غیرفعال کرد. دمای لازم برای غیرفعال شدن، بسته به نوع آنزیم متفاوت است. برخی باکتریها، از جمله Pseudomonas spp. (spp.=species)، اغلب بهعنوان بخشی از فلور عامل فساد در هر دو گروهِ شیر خامِ نگهداریشده در سرما و محصولات لبنی حرارتدیده ذکر میشوند. این باکتریها دارای آنزیمهای پروتئولیتیک و لیپولیتیک با مقاومت حرارتی بسیار بالا هستند. تنها بخشی از فعالیت این آنزیمها در اثر پاستوریزاسیون یا فرایند UHT شیر مهار میشود.
لاکتوز
لاکتوز در شیر، در مقایسه با حالت خشک، آسانتر دچار تغییرات میشود. در دماهای بالاتر از ۱۰۰ درجه سانتیگراد، واکنشی بین لاکتوز و پروتئین رخ میدهد که نتیجه آن ایجاد رنگ قهوهای متمایل در محصول است. مجموعه واکنشهایی که میان گروههای آمینی باقیماندههای اسیدهای آمینه و گروههای آلدئیدی حاصل از کربوهیدراتهای شیر رخ میدهد، واکنش مایلارد یا واکنش قهوهایشدن نامیده میشود. این واکنش باعث قهوهای شدن محصول، تغییر طعم و نیز کاهش ارزش تغذیهای میشود؛ بهویژه از طریق کاهش لیزین که یکی از اسیدهای آمینه ضروری است.
| در دماهای بالاتر از ۱۰۰ درجه سانتیگراد، واکنشی بین لاکتوز و پروتئین رخ میدهد که منجر به ایجاد رنگی قهوهای فام میشود. |
لاکتولوز یک اپیمرِ لاکتوز است که در شیر حرارتدیده تشکیل میشود (Adachi، ۱۹۵۸). مقدار لاکتولوز با افزایش شدت تیمار حرارتی افزایش مییابد و از این ویژگی میتوان برای تمایز بین شیرهای پاستوریزه، UHT و استریلشده استفاده کرد (Martinez Castro & Olano، ۱۹۸۲؛ و Geier & Klostermeyer، ۱۹۸۳).
ویتامینها
شیر منبع مهمی از ویتامینهای A، D و ویتامینهای گروه B به شمار میرود. ویتامینهای محلول در چربی از نظر حرارتی بسیار پایدارند و مقدار آنها در اثر تیمار حرارتی کاهش نمییابد. با این حال، هنگامی که شیر با ویتامین A غنیسازی میشود، به نظر میرسد اتلاف نسبی آن افزایش پیدا میکند.
کاهش ویتامینها عمدتاً مربوط به ویتامین C و برخی از ویتامینهای گروه B است. کاهش ویتامین C بهخودیخود معمولاً اهمیت زیادی ندارد، زیرا شیر منبع مهمی از این ویتامین محسوب نمیشود، اما با این وجود میتواند بر ارزش تغذیهای محصول اثر بگذارد. تجزیه ویتامین C با تجزیه ویتامین B12 مرتبط است و از اسید فولیک در برابر اکسیداسیون محافظت میکند.
تخریب ویتامینها فقط به فرایند حرارتی مربوط نمیشود، بلکه به نگهداری محصول نهایی نیز وابسته است. اگر از نفوذ اکسیژن و نور جلوگیری شود، میتوان تا حد زیادی از کاهش ویتامینها در طول نگهداری پیشگیری کرد. در صورت حضور مقدار زیاد اکسیژن، ویتامین C و ویتامین B9 ممکن است ظرف چند روز بهطور کامل از بین بروند. این واکنش بهوسیله ریبوفلاوین (ویتامین B2) کاتالیز میشود و در اثر قرار گرفتن در معرض نور تسریع مییابد. بخش عمدهای از ریبوفلاوین نیز پس از مواجهه طولانیمدت با نور از بین میرود. میزان کاهش برخی ویتامینها در اثر تیمارهای مختلف در جدول ۲.۸ ارائه شده است.
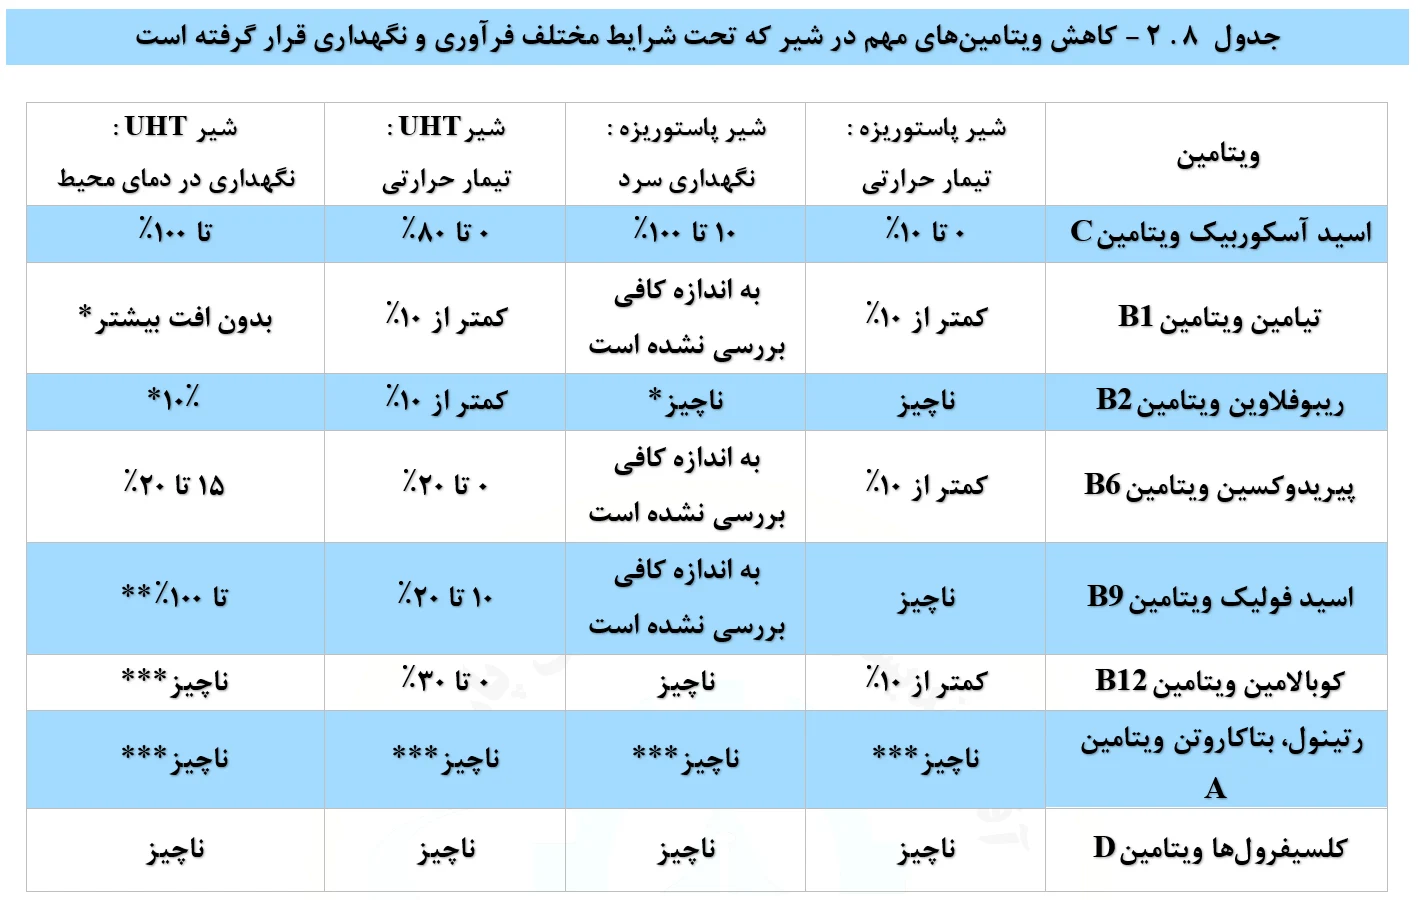
توضیحات جدول : * در صورت عدم قرارگیری در معرض نور ** وابسته به مقدار اکسیژن *** در صورتی که غنیسازی نشده باشد.
مواد معدنی
حلالیت فسفات کلسیم بهشدت به دما وابسته است. برخلاف بیشتر ترکیبات، حلالیت فسفات کلسیم با افزایش دما کاهش مییابد. این بدان معناست که حرارت دادن باعث رسوب فسفات کلسیم به صورت CCP در میسل میشود، در حالی که سرد کردن، غلظت فسفات کلسیم محلول را افزایش میدهد. پس از سرد شدن، این واکنش بهآسانی برگشتپذیر است، اما پس از حرارتدهی در دماهای بالا، برگشتپذیری آن کندتر و ناکاملتر میشود. تغییرات ایجادشده در دماهای بالا نشان میدهد که شیر اسیدیتر میشود و pH آن کاهش مییابد؛ همانگونه که در جدول ۲.۹ نشان داده شده است.
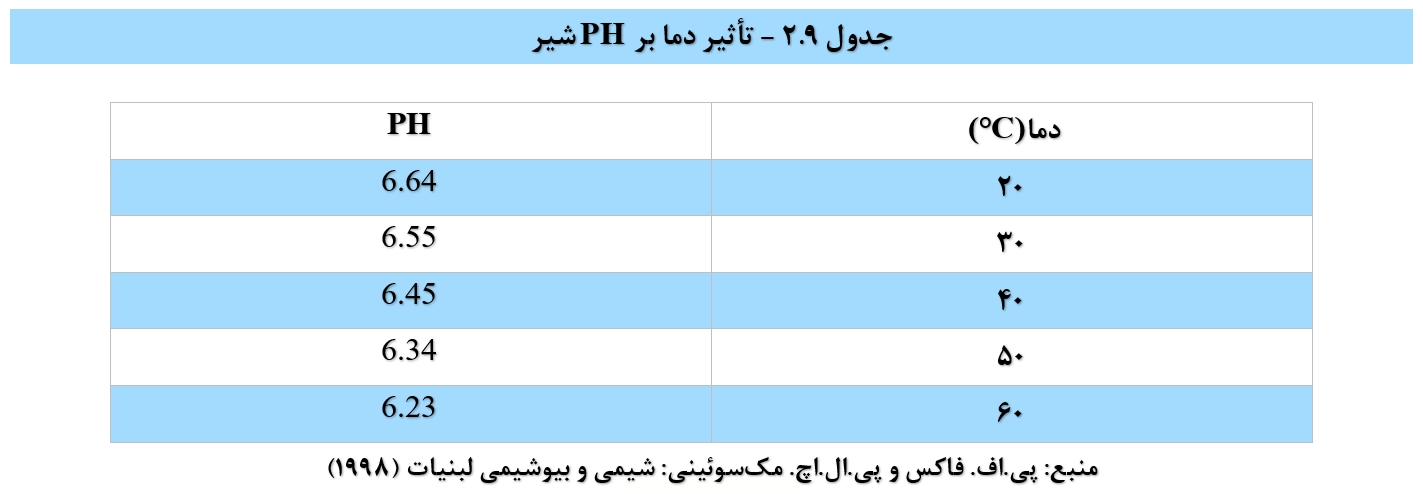
تغییرات PH را میتوان به صورت زیر توضیح داد ( فرمول 2.1 ) :
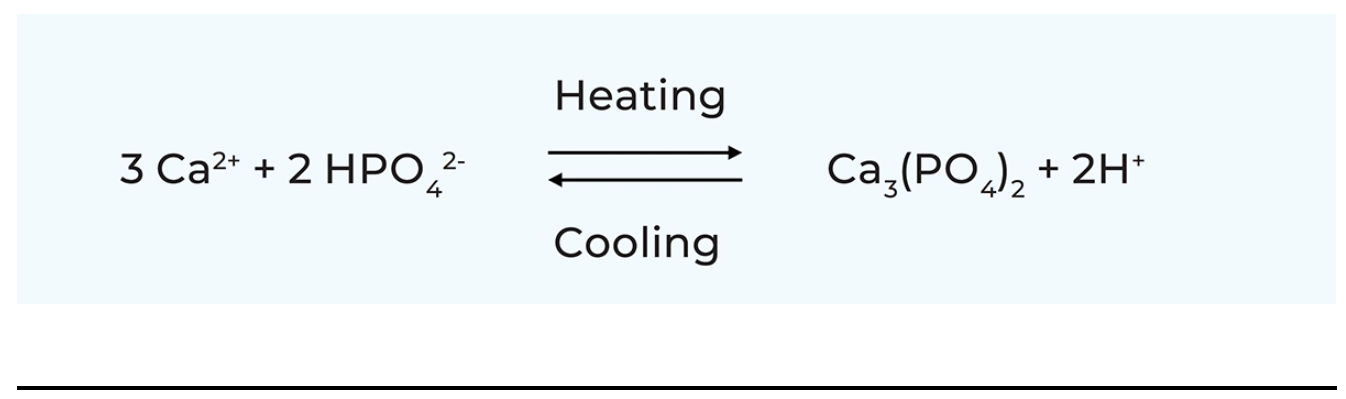
با تغلیظ شیر، میزان تغییر PH افزایش مییابد.
خواص فیزیکی شیر
ظاهر
کدورت شیر ناشی از ذرات معلق چربی، پروتئینها و برخی مواد معدنی است. رنگ شیر، بسته به میزان رنگدانه چربی آن (محتوای کاروتن)، از سفید تا زرد متغیر است. شیر بدون چربی شفافتر بوده و تهرنگی کمی آبیفام دارد.
چگالی
چگالی شیر گاو معمولاً، بسته به ترکیب آن، بین 1.028 تا 1.038 گرم بر سانتیمتر مکعب متغیر است. چگالی شیر در 15.5 درجه سانتیگراد را میتوان بر اساس فرمول زیر محاسبه کرد( فرمول 2.2 ):
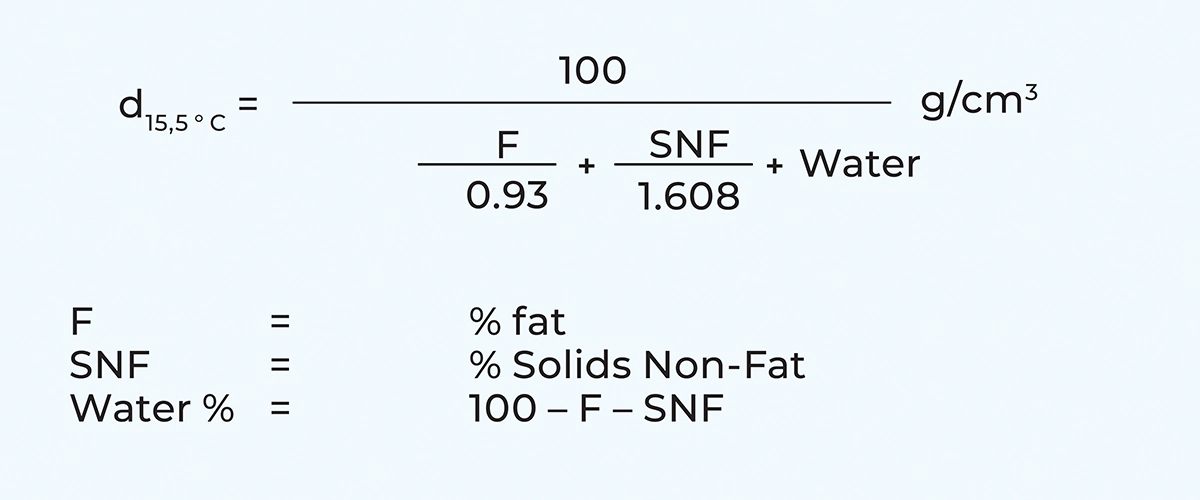
« فرمول 2.2 »
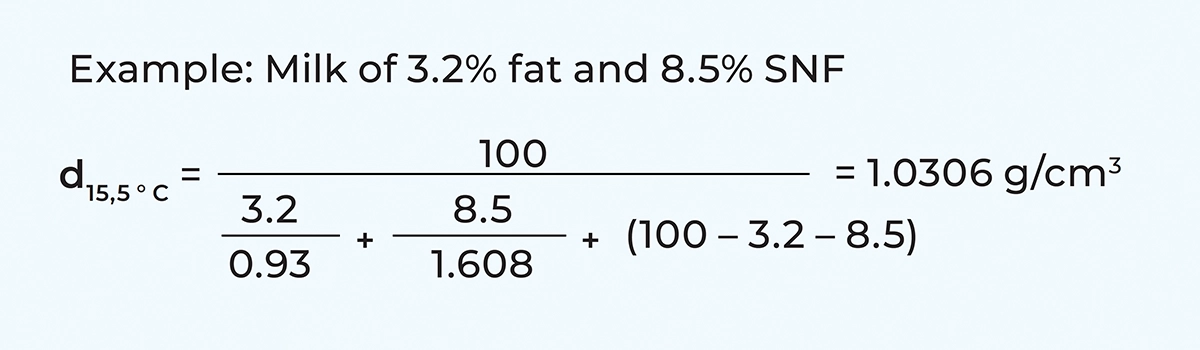
« مثال »
فشار اسمزی
فشار اسمزی، تابع تعداد مولکولها یا ذرات است و نه وزن ذرات حلشونده؛ بنابراین، ۱۰۰ مولکول به اندازه ۱۰، فشاری ده برابر بیشتر از ۱۰ مولکول به اندازه ۱۰۰ ایجاد میکنند. از این اصل نتیجه میشود که به ازای یک وزن معین، هرچه اندازه مولکولها کوچکتر باشد، فشار اسمزی بالاتر خواهد بود.
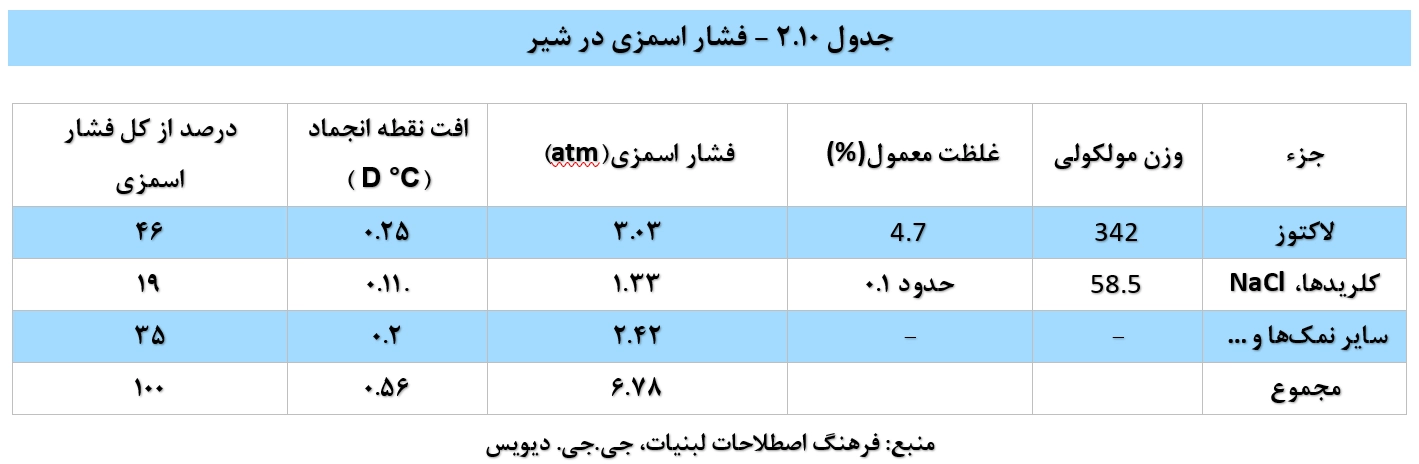
شیر از خون مشتق میشود و از آنجا که این دو مایع توسط یک غشای نیمهتراوا از هم جدا شدهاند، فشار اسمزی یکسانی دارند؛ به عبارت دیگر، شیر نسبت به خون ایزوتونیک (همفشار) است. فشار اسمزی خون، علیرغم تغییرات در ترکیباتی مانند رنگدانهها، پروتئینها و غیره، بهطور قابلتوجهی ثابت باقی میماند. همین وضعیت در مورد شیر نیز صادق است و فشار اسمزی کل آن مطابق با جدول ۲.۱۰ میباشد.
نقطه انجماد
نقطه انجماد شیر تنها شاخص قابلاعتماد برای بررسی تقلب با افزودن آب است. مشخص شده است که نقطه انجماد شیرِ گاوهای منفرد بین 0.51- تا 0.55- درجه سانتیگراد متغیر است. همچنین باید ذکر شود که وقتی شیر تحت تیمار حرارتی شدید قرار میگیرد (UHT یا استریلیزاسیون)، رسوب برخی فسفاتها باعث میشود نقطه انجماد به سمت بالاتر تغییر کند.
فشار داخلی یا فشار اسمزی نیز اختلاف نقطهٔ انجماد میان محلول و حلال (آب) را تعیین میکند؛ ازاینرو افت نقطه انجماد (D در جدول ۲٫۱۰) معیاری برای این فشار اسمزی است. هنگامی که ترکیب شیر به علت عوامل فیزیولوژیک یا پاتولوژیک تغییر کند (برای مثال در اواخر شیردهی یا ورم پستان)، به آن شیر غیرطبیعی گفته میشود، اما فشار اسمزی و در نتیجه نقطه انجماد ثابت میماند. مهمترین تغییرات در این حالت، کاهش مقدار لاکتوز و افزایش مقدار کلرید است.
اسیدیته (اسیدی بودن)
اسیدیته یک محلول به غلظت یونهای هیدروژن [H+] در آن بستگی دارد. هنگامی که غلظت یونهای [H+] و [OH−] (هیدروکسیل) با هم برابر باشد، محلول را خنثی مینامند. در یک محلول خنثی، تعداد مولهای [H+] در هر لیتر از محلول برابر با 1:10,000,000 mol/l یا7- 10 mol/l است. PH نشاندهنده غلظت یون هیدروژن در یک محلول است و از نظر ریاضی میتوان آن را بهصورت لگاریتم منفی غلظت یون هیدروژن [H+] تعریف کرد:
| PH = −log[H+] |
با اعمال این فرمول بر مثال فوق، مقدار pH به صورت زیر خواهد بود:
| PH = −log10−7 =7 |
که مقدار معمول یک محلول خنثی است. هنگامی که [H⁺] برابر با ۱ به ۱۰۰،۰۰۰ مول بر لیتر یا ۱۰⁻⁶ مول بر لیتر باشد، PH برابر با ۶ خواهد بود و محلول اسیدی است. بنابراین، هرچه توان (نما) کوچکتر باشد، اسیدیته بالاتر است. مقدار pH یک محلول یا فرآورده، نمایانگر اسیدیتهٔ فعلی (واقعی) آن است. شیر معمولی یک محلول کمی اسیدی است که pH آن بین ۶.۶ تا 8.6 متغیر بوده و مقدار 7.6 رایجترین مقدار آن در دمای حدود ۲۵ درجه ی سانتیگراد است. pH با استفاده از دستگاه pHسنج اندازهگیری میشود.
اسیدیته قابل تیتر
اسیدیته را میتوان بهصورت اسیدیته قابل تیتر نیز بیان کرد. اسیدیته قابل تیتر شیر عبارت است از مقدار محلول یون هیدروکسیل (OH−) با غلظت معین که برای افزایش PH مقدار مشخصی از شیر تا حدود 8.4 لازم است؛ این همان PH ای است که در آن متداولترین شناساگر مورد استفاده، یعنی فنلفتالئین، از بیرنگ به صورتی تغییر رنگ میدهد. در واقع، این آزمون مشخص میکند که چه مقدار قلیا برای تغییر PH شیر از 6.7 به 8.4 مورد نیاز است.
اگر شیر در اثر فعالیت باکتریها ترش شود، مقدار بیشتری قلیا لازم خواهد بود و در نتیجه اسیدیته یا عدد تیتر شیر افزایش مییابد. اسیدیته قابل تیتر را میتوان با واحدهای مختلفی بیان کرد که اساساً به غلظت سدیم هیدروکسید ( NaOH ) مورد استفاده در تیتر کردن بستگی دارند.
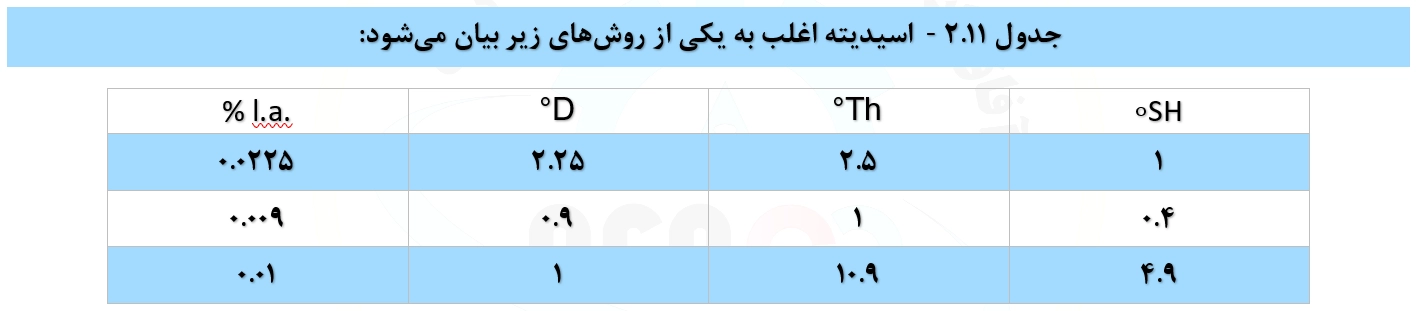
∘SH = درجه سوکسله-هنکل:
از تیتر کردن 100 میلیلیتر شیر با NaOH نرمال یکچهارم N/4 با استفاده از فنلفتالئین بهعنوان شناساگر، بهدست میآید. شیرهای معمولی معمولاً عددی در حدود 7 نشان میدهند. این روش بیشتر در اروپای مرکزی استفاده میشود.
°Th = درجه ترنر:
از تیتر کردن 100 میلیلیتر شیر که با 200 میلیلیتر آب مقطر رقیق شده است، با NaOH نرمال یکدهم N/10 و با استفاده از فنلفتالئین بهعنوان شناساگر، بهدست میآید. شیرهای معمولی معمولاً مقداری در حدود 17 دارند. این روش بیشتر در سوئد به کار میرود.
°D = درجه دورنیک:
از تیتر کردن 100 میلیلیتر شیر با NaOH نرمال یکنهم (9 / N) ، با استفاده از فنلفتالئین بهعنوان شناساگر، بهدست میآید. شیرهای معمولی معمولاً عددی در حدود 15 دارند. این روش عمدتاً در هلند و فرانسه استفاده میشود.
% l.a = درصد اسید لاکتیک :
این مقدار مشابه درجه دورنیک °Dبهدست میآید، با این تفاوت که نتیجه بر 100 تقسیم میشود. این شیوه غالباً در بریتانیا، ایالات متحده، کانادا، استرالیا و نیوزیلند به کار میرود. در جدول ۲.۱۱، بیانهای مختلف اسیدیته قابل تیتر در کنار هم آورده شدهاند. همچنین، نحوه تعیین اسیدیته بر اساس درجه ترنر در شکل ۲٫۴۶ نشان داده شده است.
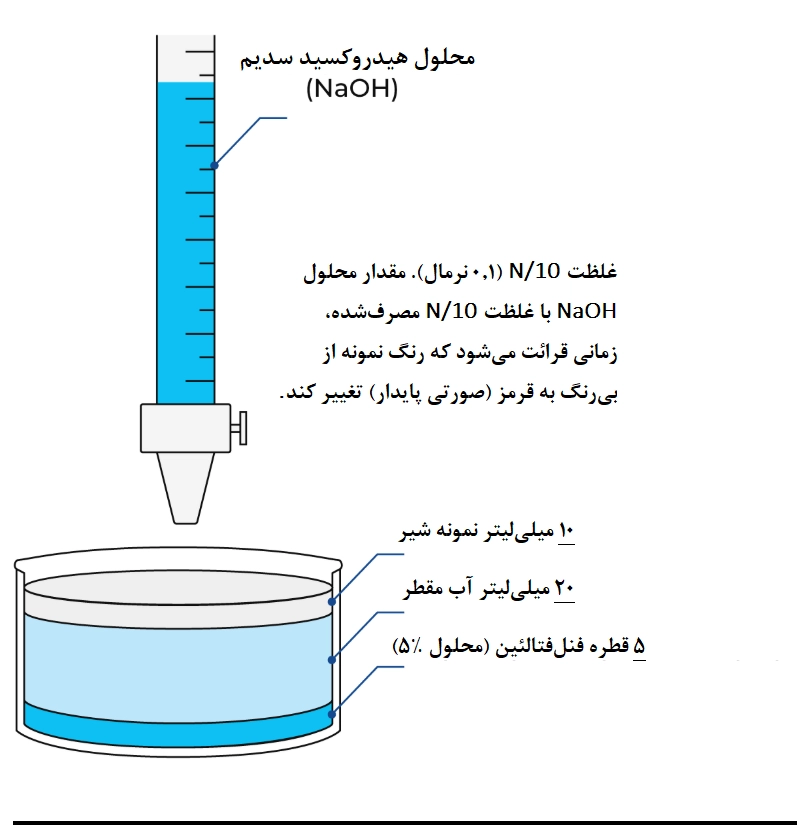
شکل ۲.۴۶ – تعیین اسیدیته بر حسب درجه ترنر °Th
| مثال: برای تیتر کردن ۱۰ میلیلیتر نمونه شیر، ۱.۷ میلیلیتر سود N/10 NaOH لازم است. بنابراین برای ۱۰۰ میلیلیتر شیر، مقدار موردنیاز برابر خواهد بود با: ml 17 = 10×1.7 در نتیجه، اسیدیته شیر برابر با 17 درجه ترنر °Th است. |
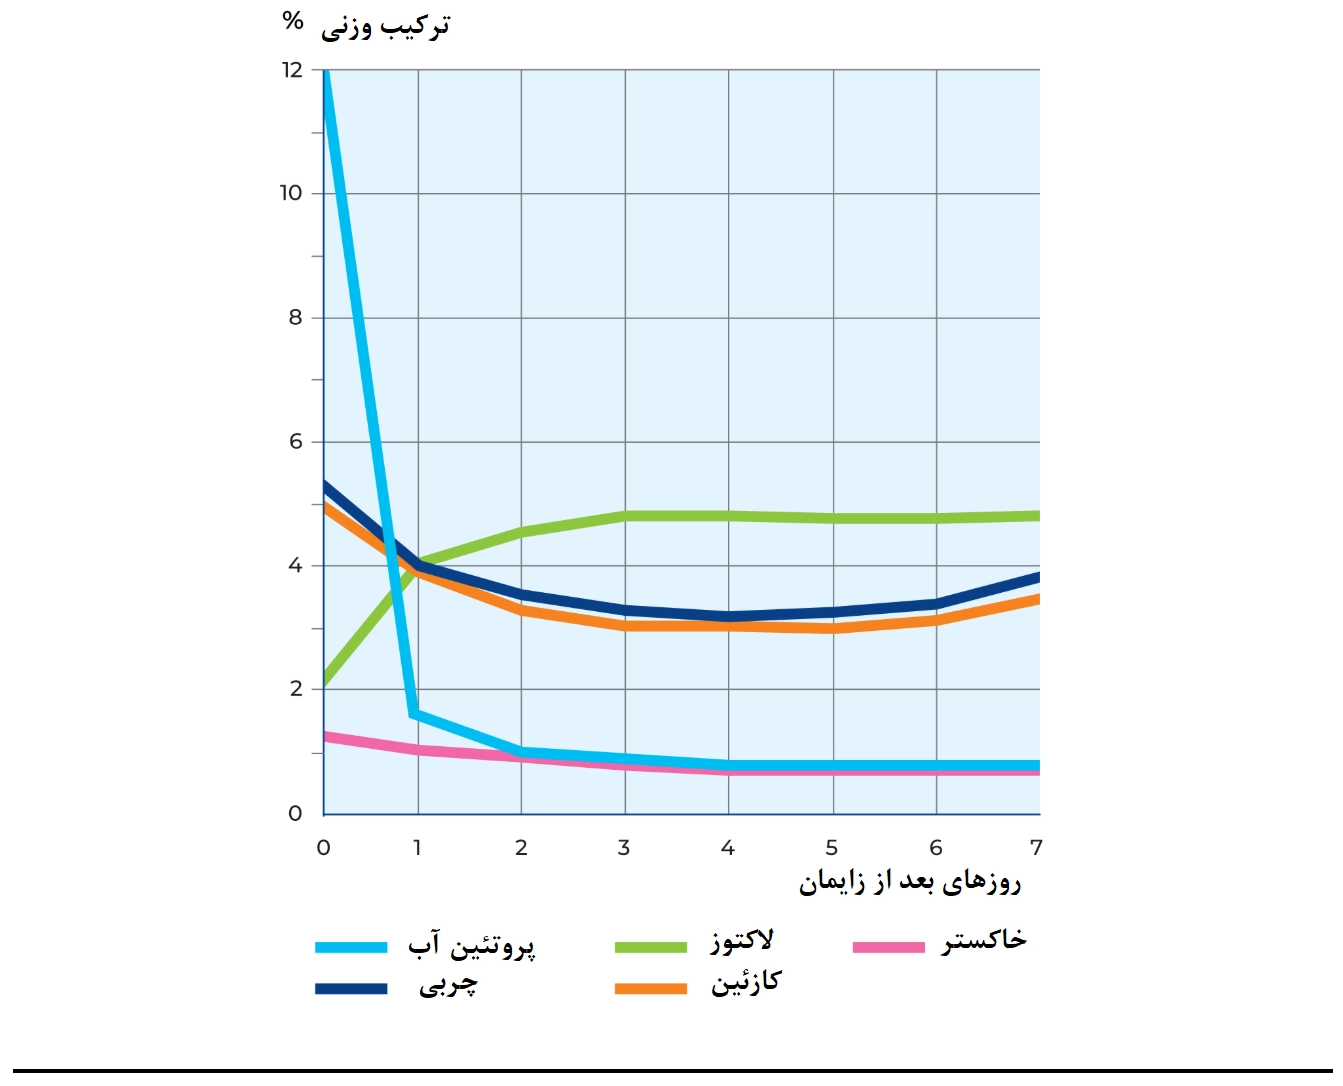
شکل ۲.۴۷- تغییرات ترکیب شیر گاو پس از زایش
آغوز (Colostrum )
اولین شیری که گاو پس از زایش تولید میکند آغوز نامیده میشود. آغوز از نظر ترکیب و ویژگیها تفاوت زیادی با شیر معمولی دارد. یکی از مشخصترین ویژگیهای آن، مقدار بالای پروتئینهای آبپنیر است؛ حدود ۱۱٪ در مقایسه با حدود ۰٫۶۵٪ در شیر معمولی، همانطور که در شکل ۲٫۴۷ نشان داده شده است.
این امر باعث میشود که آغوز هنگام حرارت دادن منعقد شود. بخش نسبتاً زیادی از پروتئینهای آبپنیر را ایمونوگلوبولینها تشکیل میدهند (IgG که در آغوز غالب است)؛ این ترکیبات تا زمانی که سیستم ایمنی خودِ گوساله بهطور کامل شکل بگیرد، از آن در برابر عفونت محافظت میکنند. آغوز دارای رنگ زرد مایل به قهوهای، بوی خاص و مزهای نسبتاً شور است. مقدار کاتالاز و پراکسیداز در آن زیاد است. چهار تا پنج روز پس از زایش، گاو شروع به تولید شیری با ترکیب طبیعی میکند که میتوان آن را با شیرهای دیگر مخلوط کرد.
فصل 3 (رئولوژی شیر خام) <<——————- فصل 2 (ترکیبات شیر خام) —————- >>فصل 1 (ترکیبات شیر خام)